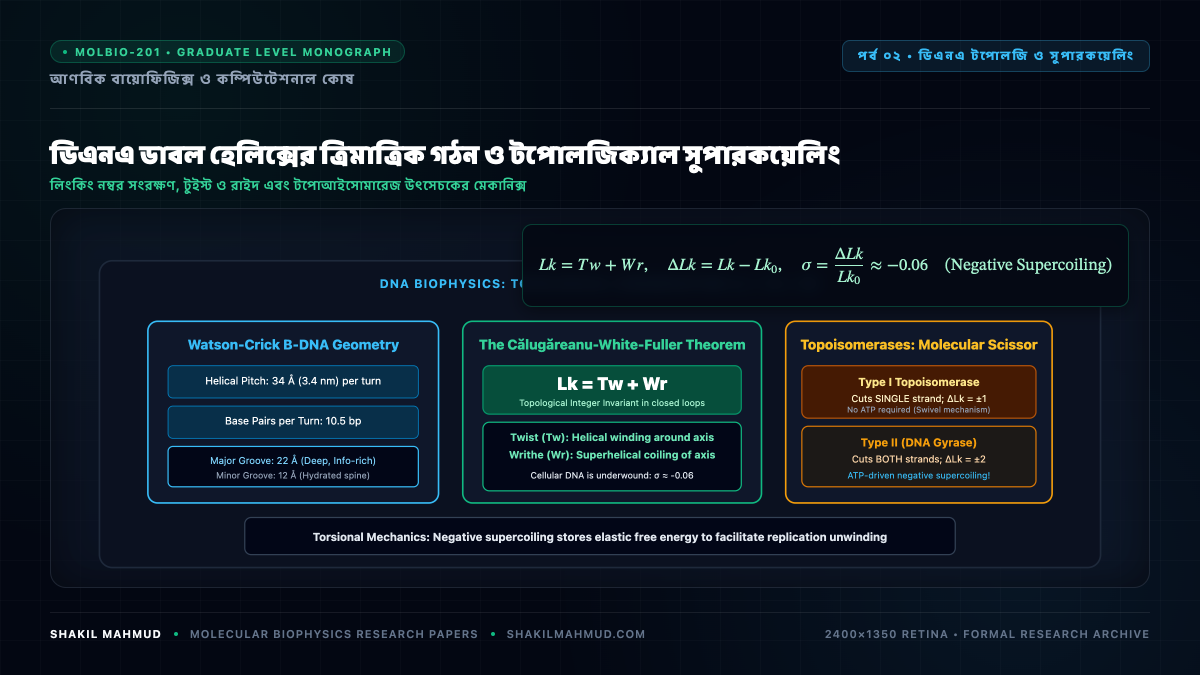
ডিএনএ কেবল জেনেটিক তথ্যের নিষ্ক্রিয় সংরক্ষণাগার নয়; কোষের অভ্যন্তরে ডিএনএ আচরণ করে একটি স্থিতিস্থাপক পলিমার রডের মতো, যার গতিবিদ্যা নিয়ন্ত্রিত হয় অন্তরক জ্যামিতি ও টপোলজির নিয়মে। এর হেলিক্যাল ঘূর্ণন এবং সুপারকয়েলিং নির্ধারণ করে জিন কীভাবে প্রকাশিত হবে এবং কীভাবে কোষ বিভাজিত হবে।
১. ওয়াটসন-ক্রিক বি-ডিএনএ (B-DNA) জ্যামিতিক বৈশিষ্ট্য
শারীরবৃত্তীয় জলীয় পরিবেশে ডিএনএ প্রধানত ডানহাতি বি-ডিএনএ (B-DNA) গঠনে অবস্থান করে:
- ব্যাস (Diameter): ২.০ ন্যানোমিটার ($2.0 text{ nm}$ বা $20 text{ AA}$)।
- হেলিক্যাল পিচ (Helical Pitch): প্রতি পূর্ণ ঘূর্ণনে ৩.৪ ন্যানোমিটার ($3.4 text{ nm}$)।
- প্রতি ঘূর্ণনে ক্ষারক জোড়: প্রায় ১০.৫টি বেস পেয়ার ($10.5 text{ bp}$)।
- অক্ষীয় উত্থান (Axial Rise): ০.৩৪ ন্যানোমিটার ($0.34 text{ nm}$)।
- মেজর ও মাইনর গ্রুভ: মেজর গ্রুভের প্রশস্ততা প্রায় ১.২ ন্যানোমিটার, যা ট্রান্সক্রিপশন ফ্যাক্টরের সাথে নির্দিষ্ট হাইড্রোজেন বন্ধন গঠনের জন্য রাসায়নিক তথ্য উন্মুক্ত রাখে।
ডাবল হেলিক্সের স্থিতিশীলতা কেবল অনুভূমিক হাইড্রোজেন বন্ধনের ওপর নির্ভরশীল নয়; বরং এর মূল চালিকাশক্তি হলো ভার্টিক্যাল বেস স্ট্যাকিং (Base Stacking) শক্তি। পাশাপাশি থাকা অ্যারোমেটিক রিংগুলোর $pi$-ইলেকট্রন মেঘের মিথস্ক্রিয়া এবং হাইড্রোফোবিক প্রভাব হেলিক্সকে অতিরিক্ত ঋণাত্মক মুক্ত শক্তি ($Delta G_{text{stacking}}^circ sim -1.0 text{ to } -3.5 text{ kcal/mol}$) প্রদান করে।
২. কালুগারিয়ানু-হোয়াইট-ফুলার টপোলজিক্যাল উপপাদ্য
একটি আবদ্ধ চক্রাকার ডিএনএ অণুর (যেমন ব্যাকটেরিয়াল প্লাজমিড) দুটি স্ট্র্যান্ড যখন একে অপরের সাথে পেঁচিয়ে থাকে, তখন রাসায়নিক বন্ধন না ভেঙে তাদের পেঁচানো খোলা অসম্ভব। এই টপোলজিক্যাল অবিচলতা Călugăreanu-White-Fuller Theorem দ্বারা বর্ণিত হয়:
[
Lk = Tw + Wr
]
যেখানে:
- $Lk$ (Linking Number): একটি পূর্ণসংখ্যা যা নির্দেশ করে একটি স্ট্র্যান্ড অপর স্ট্র্যান্ডটিকে কতবার বৃত্তাকারে ছেদ করেছে। এটি একটি বিশুদ্ধ টপোলজিক্যাল ইনভ্যারিয়েন্ট।
- $Tw$ (Twist): ডিএনএ অক্ষের চারপাশে দুটি স্ট্র্যান্ডের স্বাভাবিক হেলিক্যাল প্যাঁচের সংখ্যা ($Tw approx N / 10.5$)।
- $Wr$ (Writhe): ত্রিমাত্রিক স্থানে ডিএনএ অক্ষের নিজের উপর কুঁকড়ে যাওয়ার পরিমাণ (সুপারকয়েলিংয়ের স্থানিক রূপ)।
৩. সুপারকয়েলিং ঘনত্ব ও সঞ্চিত স্থিতিস্থাপক শক্তি
একটি শিথিল ডিএনএ অণুর স্বাভাবিক লিঙ্কিং সংখ্যা হলো $Lk_0 = N / 10.5$। লিঙ্কিং সংখ্যার বিচ্যুতি $Delta Lk = Lk – Lk_0$। আপেক্ষিক সুপারহেলিক্যাল ঘনত্ব ($sigma$) হলো:
[
sigma = frac{Delta Lk}{Lk_0}
]
কোষে ব্যাকটিরিয়ার ডিএনএ স্বাভাবিকভাবেই নেগেটিভ সুপারকয়েল্ড অবস্থায় থাকে ($sigma approx -0.06$)। এই অবস্থায় ডিএনএ-এর ভেতর যে টরসোনাল স্থিতিশক্তি সঞ্চিত হয়, তা হলো:
[
Delta G_{text{sc}} propto (Delta Lk)^2
]
এই অতিরিক্ত ঋণাত্মক সুপারকয়েলিং ডিএনএ-এর দুই স্ট্র্যান্ডকে সহজে উন্মুক্ত করতে সাহায্য করে, ফলে আরএনএ পলিমারেজ কোনো অতিরিক্ত শক্তি অপচয় না করেই ট্রান্সক্রিপশন বা জিন পাঠের প্রক্রিয়া শুরু করতে পারে।
৪. টপোআইসোমারেজ: জিনোমের আণবিক যন্ত্র
ডিএনএ অনুলিপিকরণ বা ট্রান্সক্রিপশনের সময় এনজাইমগুলো যখন দ্রুত অগ্রসর হয়, তখন তাদের সামনে তীব্র পজিটিভ সুপারকয়েলিং ($+Wr$) সৃষ্টি হয় যা ডিএনএ-কে জ্যাম করে দিতে পারে। এই চাপ দূর করতে কোষে নিয়োজিত রয়েছে টপোআইসোমারেজ (Topoisomerases) এনজাইম:
- টাইপ-১ টপোআইসোমারেজ: ডিএনএ-এর একটি স্ট্র্যান্ড সাময়িকভাবে কেটে ঘুরিয়ে দিয়ে $Delta Lk = pm 1$ পরিবর্তন করে, যার জন্য এটিপির প্রয়োজন হয় না।
- টাইপ-২ টপোআইসোমারেজ (যেমন ডিএনএ গাইরেজ): এটিপির শক্তিতে ডিএনএ-এর দুটি স্ট্র্যান্ডকেই একসাথে কেটে অপর একটি অংশ তার মধ্য দিয়ে পার করে দিয়ে ঠিক $Delta Lk = pm 2$ পরিমাণে টপোলজি পরিবর্তন করে।




