চার বিলিয়ন বছর পূর্বে, পৃথিবীর অন্ধকার, অক্সিজেনহীন আদিম সমুদ্রের অতল তলদেশে এক অলৌকিক গুণগত রূপান্তর ঘটেছিল। জড় খনিজ শিলা জীবন্ত কোষের ন্যায় আচরণ করতে শুরু করে। ক্ষারীয় হাইড্রোথার্মাল ভেন্টের (alkaline hydrothermal vents) সূক্ষ্ম ছিদ্রযুক্ত খনিজ প্রকোষ্ঠের ভেতরে নিরবচ্ছিন্ন প্রাকৃতিক তড়িৎরাসায়নিক প্রোটন গ্রেডিয়েন্ট কার্বন ডাই-অক্সাইডকে জৈব অণুতে বিজারিত করতে চালিকাশক্তি জুগিয়েছিল। এই রাসায়নিক সূতিকাগারে রাইবোনিউক্লিক অ্যাসিডের (RNA) অনুঘটনশীল শৃঙ্খলগুলো ডিজিটাল তথ্য সংরক্ষণ ও নিজেদের প্রতিলিপি তৈরি করতে শেখে—পদার্থবিজ্ঞান ও ভূ-রসায়নের মহাজাগতিক সীমানা পেরিয়ে উন্মোচিত হয় স্বনির্ভর জৈবিক বিবর্তনের নবযুগ।
জীবন কী? তাপগতিবিদ্যার চ্যালেঞ্জ
প্রাণের সূচনা কীভাবে হয়েছিল তা অনুধাবনের জন্য পদার্থবিজ্ঞানের দৃষ্টিতে প্রাণের প্রকৃত স্বরূপ বোঝা অপরিহার্য। ১৯৪৪ সালে কোয়ান্টাম পথিকৃৎ এরভিন শ্রোডিঙ্গার (Erwin Schrödinger) তাঁর বিখ্যাত গ্রন্থ “What is Life?”-এ প্রস্তাব করেছিলেন যে, জীবন্ত সত্তা চারপাশের পরিবেশ থেকে ঋণাত্মক এনট্রপি ($\Delta S < 0$) আহরণ করে টিকে থাকে। একটি জীবন্ত সত্তা হীরা বা পাথরের মতো কোনো স্থির বস্তু নয়; এটি একটি সাম্যাবস্থাহীন অপচয়ী কাঠামো (non-equilibrium dissipative structure)—পদার্থ ও শক্তির এক অবিরাম ঘূর্ণাবর্ত, যা উচ্চমানের রাসায়নিক শক্তি গ্রহণ এবং চারপাশে নিম্নমানের তাপশক্তি নির্গমন করে নিজের ভেতরের কাঠামোগত শৃঙ্খলা অক্ষুণ্ণ রাখে।
আধুনিক প্রাণরসায়নবিদরা একটি ন্যূনতম জীবন্ত ব্যবস্থার তিনটি অবিচ্ছেদ্য স্তম্ভ চিহ্নিত করেছেন:
- ১. প্রকোষ্ঠায়ন (Compartmentalization): একটি অর্ধ-ভেদ্য ভৌত সীমানা (লিপিড ঝিল্লি) যা অভ্যন্তরীণ প্রাণরাসায়নিক পরিবেশকে বিশৃঙ্খল বহিঃপরিবেশ থেকে পৃথক রাখে এবং অত্যাবশ্যকীয় অণুগুলোকে সাগরে ভেসে যাওয়া থেকে রক্ষা করে।
- ২. অবিচ্ছিন্ন বিপাকক্রিয়া (Continuous Metabolism): রাসায়নিক বিক্রিয়ার একটি স্ব-পরিচালিত চক্র যা বাহ্যিক শক্তি ও কার্বন আহরণ করে কোষের উপাদান সংশ্লেষ করে এবং ঝিল্লির দুই পাশে তড়িৎরাসায়নিক চার্জ বজায় রাখে।
- ৩. ডিজিটাল জিনগত তথ্য (Digital Genetic Information): রৈখিক পলিমার অণু (RNA বা DNA) যা ক্রমভিত্তিক তথ্য সংরক্ষণ করতে পারে, অনুঘটক যন্ত্রপাতিকে নির্দেশ দিতে পারে, নির্ভুলভাবে প্রতিলিপি তৈরি করতে পারে এবং ডারউইনীয় বংশগত প্রকরণ প্রদর্শনে সক্ষম।
আদিম ঝোলের ভ্রান্তি: মিলার-উরে ফ্লাস্ক কেন অসম্পূর্ণ ছিল
১৯৫৩ সালে শিকাগো বিশ্ববিদ্যালয়ে স্ট্যানলি মিলার ও হ্যারল্ড উরে তাঁদের বিখ্যাত বৈদ্যুতিক স্ফুলিঙ্গ পরীক্ষা সম্পন্ন করেন। পানি, মিথেন ($\text{CH}_4$), অ্যামোনিয়া ($\text{NH}_3$) এবং হাইড্রোজেন ($\text{H}_2$) সমৃদ্ধ কাচের ফ্লাস্কের ভেতর উচ্চ-ভোল্টেজের স্ফুলিঙ্গ পাঠিয়ে মিলার প্রোটিনের গাঠনিক একক কুড়িটিরও বেশি অ্যামিনো অ্যাসিড সংশ্লেষ করেন। প্রায় অর্ধশতাব্দী ধরে পাঠ্যপুস্তকে শেখানো হয়েছে যে অগভীর উষ্ণ জলাশয়ে বজ্রপাতের মাধ্যমে এই “আদিম জৈব ঝোল” (primordial soup) থেকে প্রাণের জন্ম হয়েছিল।
তবে আধুনিক মহাজাগতিক রসায়ন ও গ্রহীয় ভূতত্ত্ব উন্মুক্ত সাগরের ঝোল তত্ত্বের দুটি অপূরণীয় ত্রুটি প্রকাশ করেছে:
১. নিরপেক্ষ বায়ুমণ্ডলের বাস্তবতা
হেডিয়ান জারকনের ম্যান্টল জারণ অবস্থা বিশ্লেষণ করে দেখা গেছে যে প্রাচীন আগ্নেয়গিরির গ্যাসে মিথেন বা হাইড্রোজেনের বদলে মূলত কার্বন ডাই-অক্সাইড ($\text{CO}_2$) এবং নাইট্রোজেন ($\text{N}_2$) প্রাধান্য পেত, যা ছিল দুর্বল বিজারক বা নিরপেক্ষ বায়ুমণ্ডল। যখন $\text{CO}_2$ ও $\text{N}_2$ দিয়ে মিলারের পরীক্ষা পুনরাবৃত্তি করা হয়, তখন অ্যামিনো অ্যাসিডের উৎপাদন শূন্যের কাছাকাছি নেমে আসে।
২. লঘুকরণ ও ঘনীভবন সমস্যা
উন্মুক্ত সাগরে জৈব অণু উৎপন্ন হলেও পৃথিবীর মহাসাগরের বিপুল জলরাশি ($১.৪ \times ১০^{২১}\text{ লিটার}$) সেগুলোকে অতি-লঘু ন্যানোমোলার ঘনত্বে বিলীন করে দিত। উপরন্তু, অ্যামিনো অ্যাসিড থেকে প্রোটিন বা নিউক্লিওটাইড থেকে আরএনএ তৈরি একটি ঘনীভবন বিক্রিয়া (condensation reaction), যাতে পানি অণু অপসারিত হয় ($A + B \to AB + \text{H}_2\text{O}$)। উন্মুক্ত পানিতে লা শাতেলিয়ের নীতি অনুযায়ী বিক্রিয়াটি স্বতঃস্ফূর্তভাবে পলিমার ভাঙার দিকে (হাইড্রোলাইসিস) ধাবিত হয়, পলিমার তৈরির দিকে নয়!
গভীর সমুদ্রের ক্ষারীয় ভেন্ট: পৃথিবীর প্রাকৃতিক তড়িৎরাসায়নিক চুল্লি
১৯৮৯ সালে ভূ-রসায়নবিদ মাইকেল রাসেল (Michael Russell) এক বৈপ্লবিক মডেল প্রস্তাব করেন, যা আজ অ্যাবায়োজেনেসিসের সবচেয়ে গ্রহণযোগ্য বৈজ্ঞানিক ভিত্তি: প্রাণের সূচনা সূর্যের আলোযুক্ত পৃষ্ঠের জলাশয়ে নয়, বরং গভীর সমুদ্রের ক্ষারীয় হাইড্রোথার্মাল ভেন্টে (যেমন মধ্য আটলান্টিক শৈলশিরার “Lost City” হাইড্রোথার্মাল ক্ষেত্র) ঘটেছিল।
রাসেল স্পষ্ট করেন যে প্রাণের সূতিকাগার ছিল না ৩৫০°C তাপমাত্রার বিধ্বংসী অ্যাসিডযুক্ত আগ্নেয় “ব্ল্যাক স্মোকার”। বরং তা ছিল মহাসাগরীয় ভূত্বকের ম্যান্টল পেরিডোটাইট শিলার সাথে সমুদ্রের পানির মৃদু নিম্ন-তাপমাত্রার ভূতাত্ত্বিক বিক্রিয়া: সার্পেনটিনাইজেশন (Serpentinization)।
$$\text{অলিভাইন} + \text{পানি} \to \text{সার্পেনটিন} + \text{ব্রুসাইট} + \text{ম্যাগনেটাইট} + \text{হাইড্রোজেন } (\text{H}_2)$$
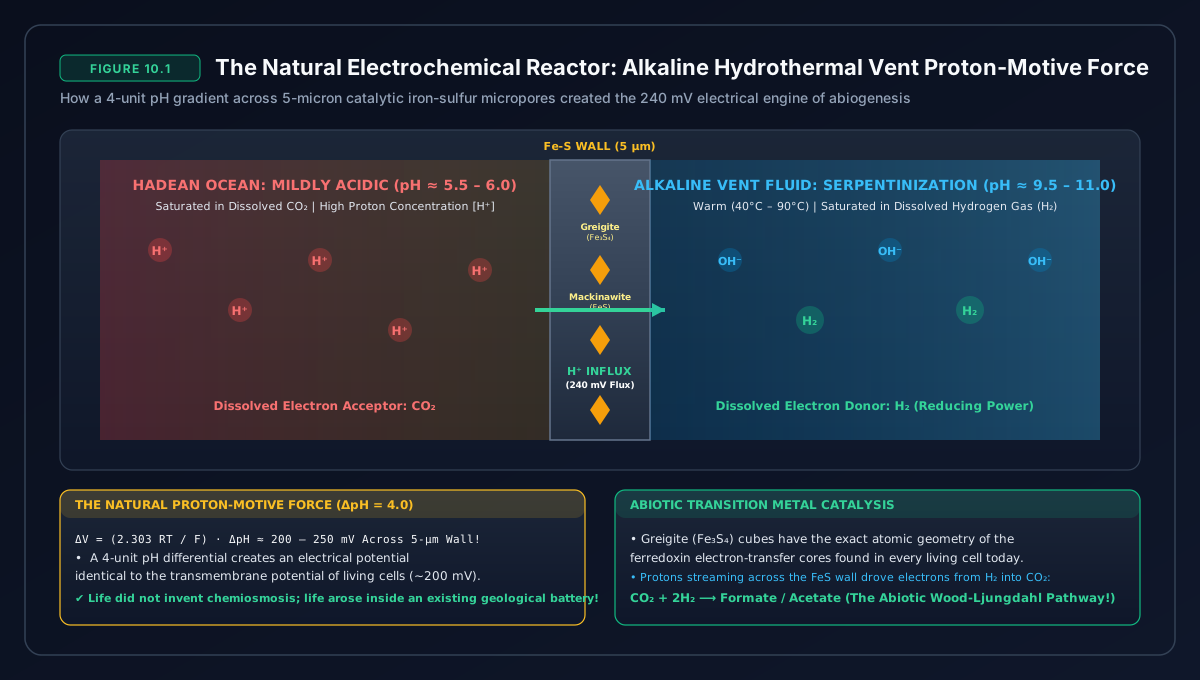
সার্পেনটিনাইজেশনের ফলে উষ্ণ (৪০° থেকে ৯০°C), তীব্র ক্ষারীয় ($\text{pH } ৯\text{ থেকে } ১১$) তরল উৎপন্ন হয় যা দ্রবীভূত হাইড্রোজেন ($\text{H}_2$), মিথেন ও হাইড্রোসালফাইড ($\text{HS}^-$) গ্যাসে সম্পৃক্ত। এই ক্ষারীয় রস যখন হেডিয়ান মহাসমুদ্রের তলদেশে প্রবেশ করত, তখন তা বায়ুমণ্ডলের শত শত বার চাপের $\text{CO}_2$ গ্যাসে সম্পৃক্ত অম্লীয় সমুদ্রজলের ($\text{pH } ৫.৫\text{ থেকে } ৬.০$) সংস্পর্শে আসত।
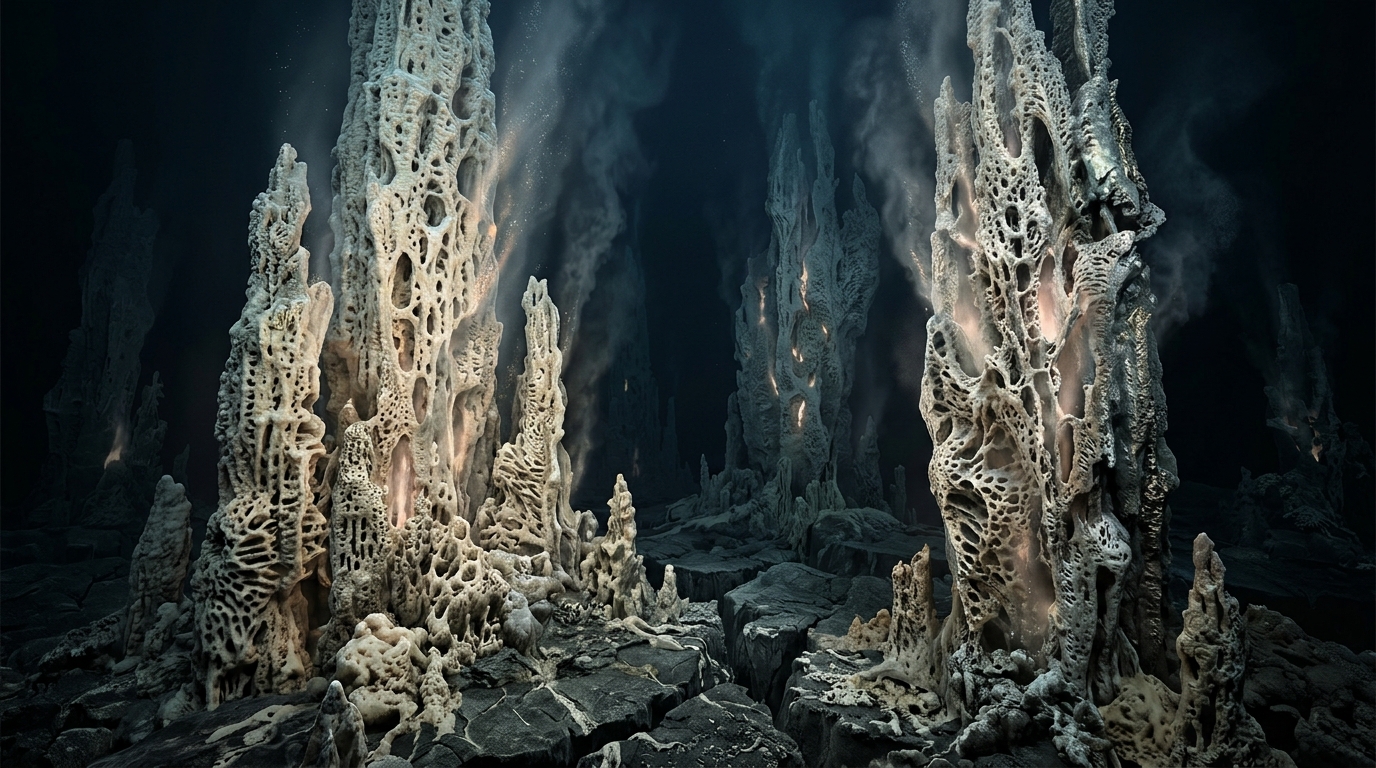
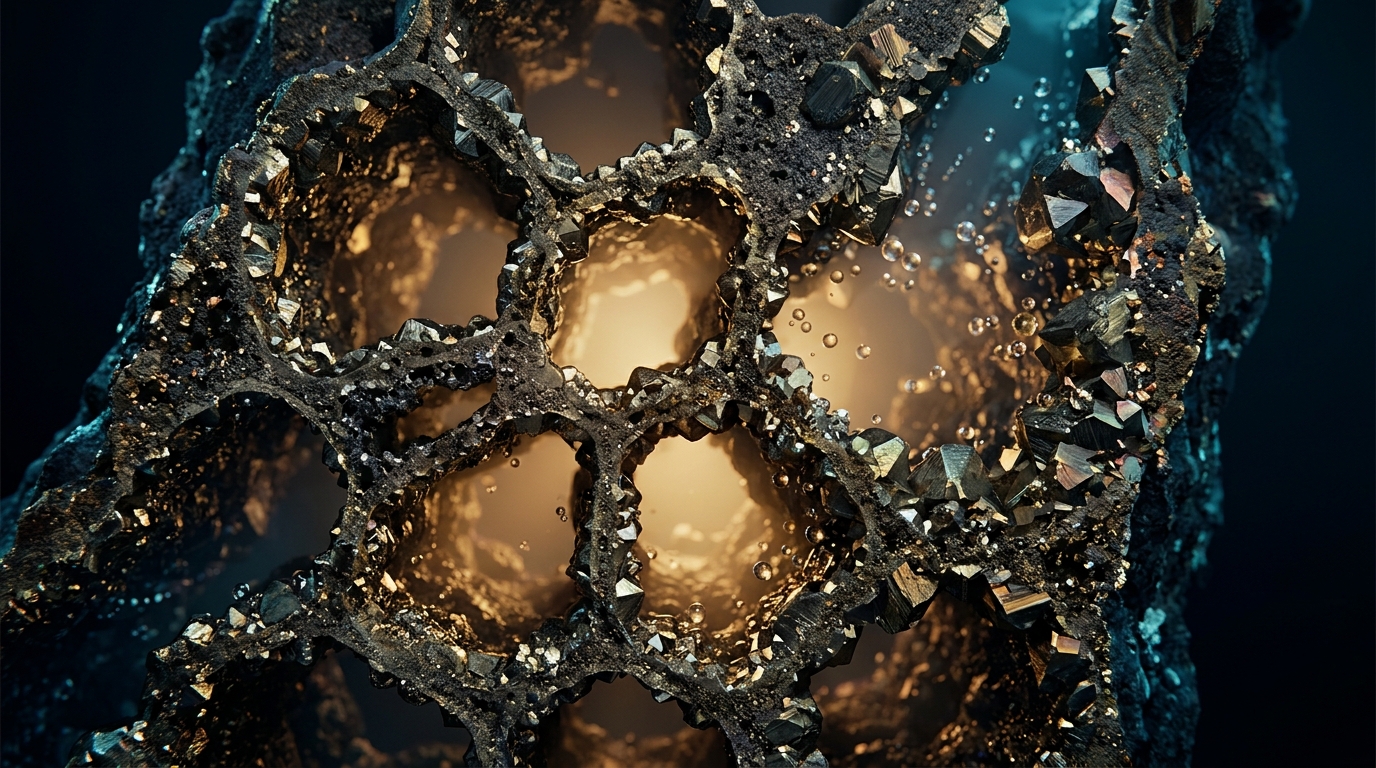
এই সংযোগস্থলে ক্যালসিয়াম কার্বনেট ও আয়রন-সালফার খনিজ (যেমন গ্রেগাইট ও ম্যাকিনাউইট) অধঃক্ষিপ্ত হয়ে বিশাল চিমনি গঠন করত, যার ভেতর ছিল অসংখ্য সূক্ষ্ম, আন্তঃসংযুক্ত অজৈব প্রকোষ্ঠ (১০ থেকে ১০০ মাইক্রন চওড়া)। এই ছিদ্রগুলোর পাতলা অর্ধ-পরিবাহী আয়রন-সালফার প্রাচীরের দুই পাশে বিরাজ করত প্রাকৃতিক pH পার্থক্য: প্রায় ৪ থেকে ৫ ইউনিটের pH ব্যবধান, যা প্রায় ২০০ থেকে ৩০০ মিলিভোল্টের এক প্রাকৃতিক তড়িৎ বিভব তৈরি করত!
খনিজ প্রাচীরের এই প্রাকৃতিক তড়িৎ গ্রেডিয়েন্টটির মান ও অভিমুখ ঠিক সেই প্রোটন-চালিকা শক্তির ($\sim ২০০\text{ mV}$) অনুরূপ, যা আধুনিক প্রতিটি জীবকোষ পিটার মিচেলের কেমিওসমোটিক প্রক্রিয়ায় এটিপি (ATP) সংশ্লেষে ব্যবহার করে! কোষের লিপিড পর্দা ও প্রোটিন পাম্প বিবর্তিত হওয়ার আগে আদিম জীবন খোদ পৃথিবীর ভূতাত্ত্বিক ব্যাটারিকে নিজের শক্তিসূত্র হিসেবে ব্যবহার করেছিল।
প্রাচীন রাসায়নিক ইঞ্জিন: উড-জুংডাল পথ
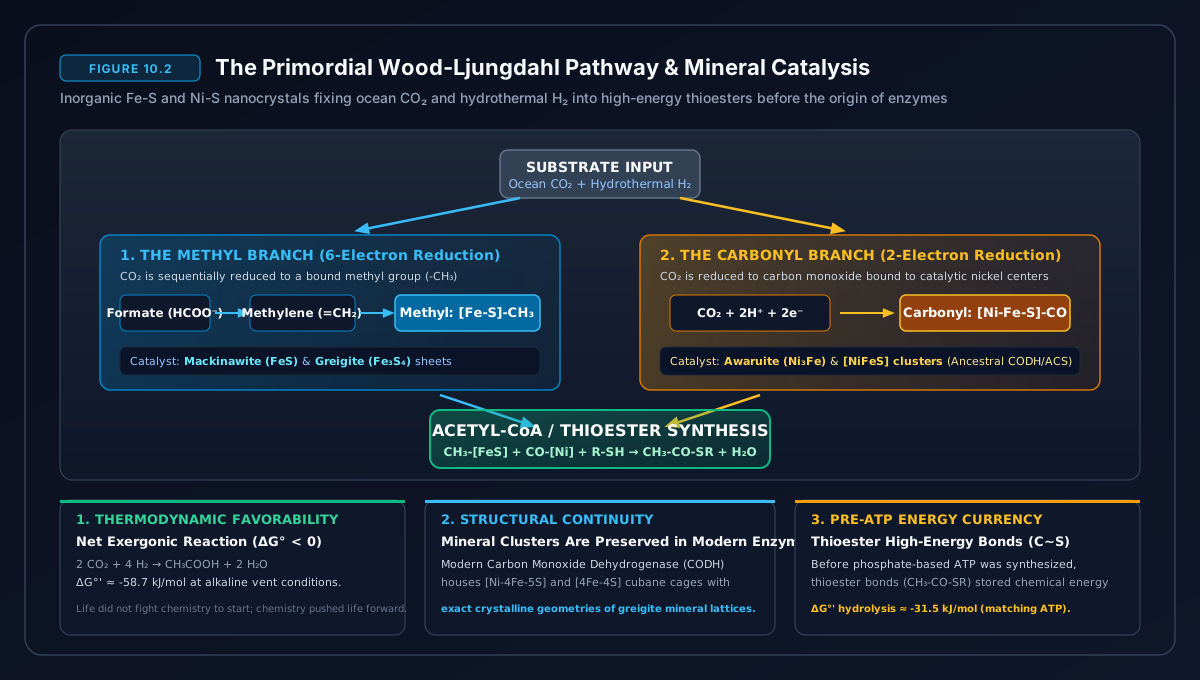
অজৈব কার্বন ডাই-অক্সাইড কীভাবে প্রথম জৈব অণুতে রূপান্তরিত হলো? জীববিজ্ঞানের সবচেয়ে প্রাচীন বিপাকীয় পথ হলো উড-জুংডাল (অ্যাসিটাইল-CoA) পথ। এটি প্রাচীন আর্কিয়া ও ব্যাকটেরিয়া উভয়ের মধ্যেই বিদ্যমান একমাত্র কার্বন-স্থিতিকরণ পথ, যা শক্তি খরচের বদলে উল্টো শক্তি নির্গমন করে:
$$\text{CO}_2 + 2\text{H}_2 \to \text{ফরমেট} / \text{অ্যাসিটেট} + \text{H}_2\text{O} \quad (\Delta G^\circ < 0)$$
ভেন্টের সূক্ষ্ম প্রকোষ্ঠের ভেতরে অনুঘটক আয়রন-সালফার খনিজগুলো ($\text{FeS}$ ও $\text{NiS}$) আধুনিক এনজাইমের অজৈব পূর্বসূরি হিসেবে কাজ করত। খনিজ প্রাচীরের মধ্য দিয়ে প্রবাহিত প্রাকৃতিক প্রোটন গ্রেডিয়েন্টের শক্তিতে হাইড্রোজেন সরাসরি দ্রবীভূত $\text{CO}_2$-কে বিজারিত করে ফরমেট, অ্যাসিটেট, পাইরুভেট এবং অ্যাসিটাইল-থায়োএস্টার তৈরি করত—যা প্রাণরসায়নের মৌলিক ভিত্তিপ্রস্তর।
আরএনএ জগৎ: আণবিক মুরগি-না-ডিম ধাঁধার সমাধান
আধুনিক জীববিজ্ঞানে জীবন দুটি ভিন্ন ম্যাক্রোমলিকিউলের কঠোর শ্রমবিভাজনের মাধ্যমে পরিচালিত হয়:
- ডিএনএ (DNA – নকশা): উচ্চ রাসায়নিক স্থায়িত্বের কারণে জিনগত কোড নিরাপদে সঞ্চয় করে, কিন্তু এটি রাসায়নিকভাবে নিষ্ক্রিয় এবং কোনো বিক্রিয়া অনুঘটন বা নিজস্ব প্রতিলিপি তৈরি করতে পারে না।
- প্রোটিন (Protein – কর্মী): জটিল ত্রিমাত্রিক এনজাইমে ভাঁজ হয়ে সকল অনুঘটন ও বিপাক পরিচালনা করে, কিন্তু বংশগত ডিজিটাল তথ্য সংরক্ষণ বা সঞ্চালন করতে পারে না।
ডিএনএ প্রতিলিপন করতে প্রোটিন প্রয়োজন; আবার প্রোটিনের অ্যামিনো অ্যাসিডের ক্রম নির্ধারণে ডিএনএ প্রয়োজন। অপরটির অনুপস্থিতিতে কীভাবে এদের কোনো একটির সূচনা হতে পারে?
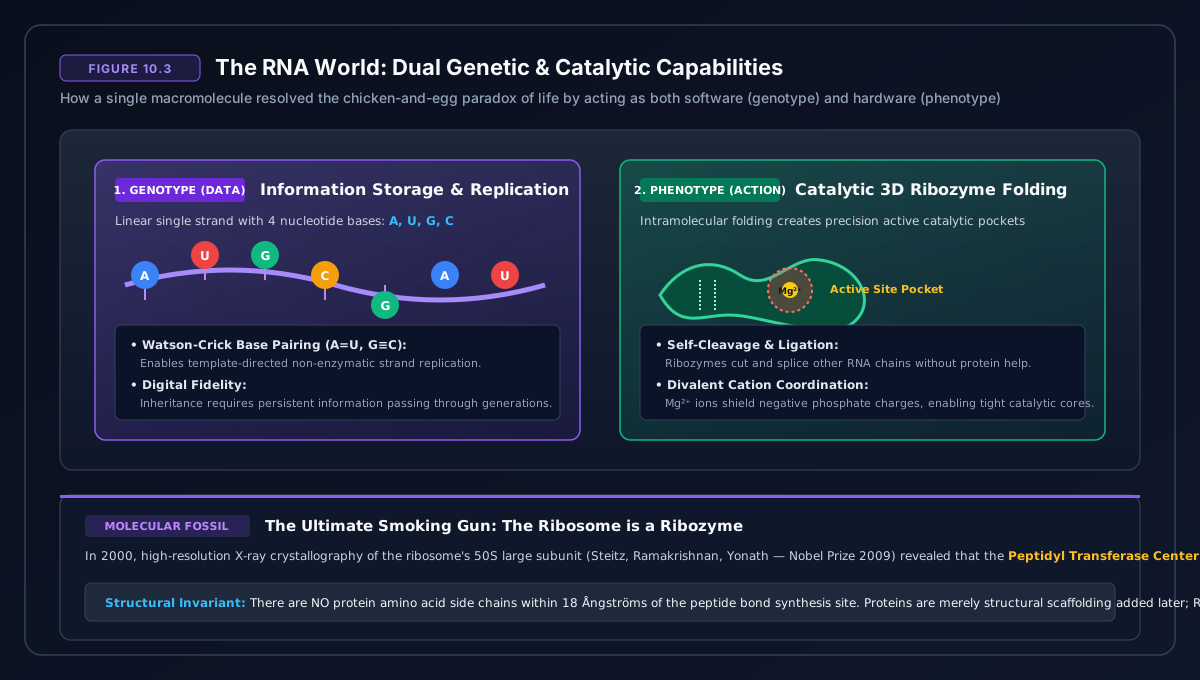
১৯৮০-এর দশকে টমাস চেক এবং সিডনি অল্টম্যান আবিষ্কার করেন যে রাইবোনিউক্লিক অ্যাসিড (RNA) একই সাথে উভয় দায়িত্ব পালন করতে পারে! চারটি ক্ষারের (অ্যাডিনিন, সাইটোসিন, গুয়ানিন, ইউরাসিল) মাধ্যমে জিনগত তথ্য সংরক্ষণের পাশাপাশি একক-সূত্রী আরএনএ জটিল ত্রিমাত্রিক ভাঁজে সজ্জিত হয়ে এনজাইমের মতো বিক্রিয়া পরিচালনা করতে পারে, যাদের বলা হয় রাইবোজাইম (Ribozymes)।
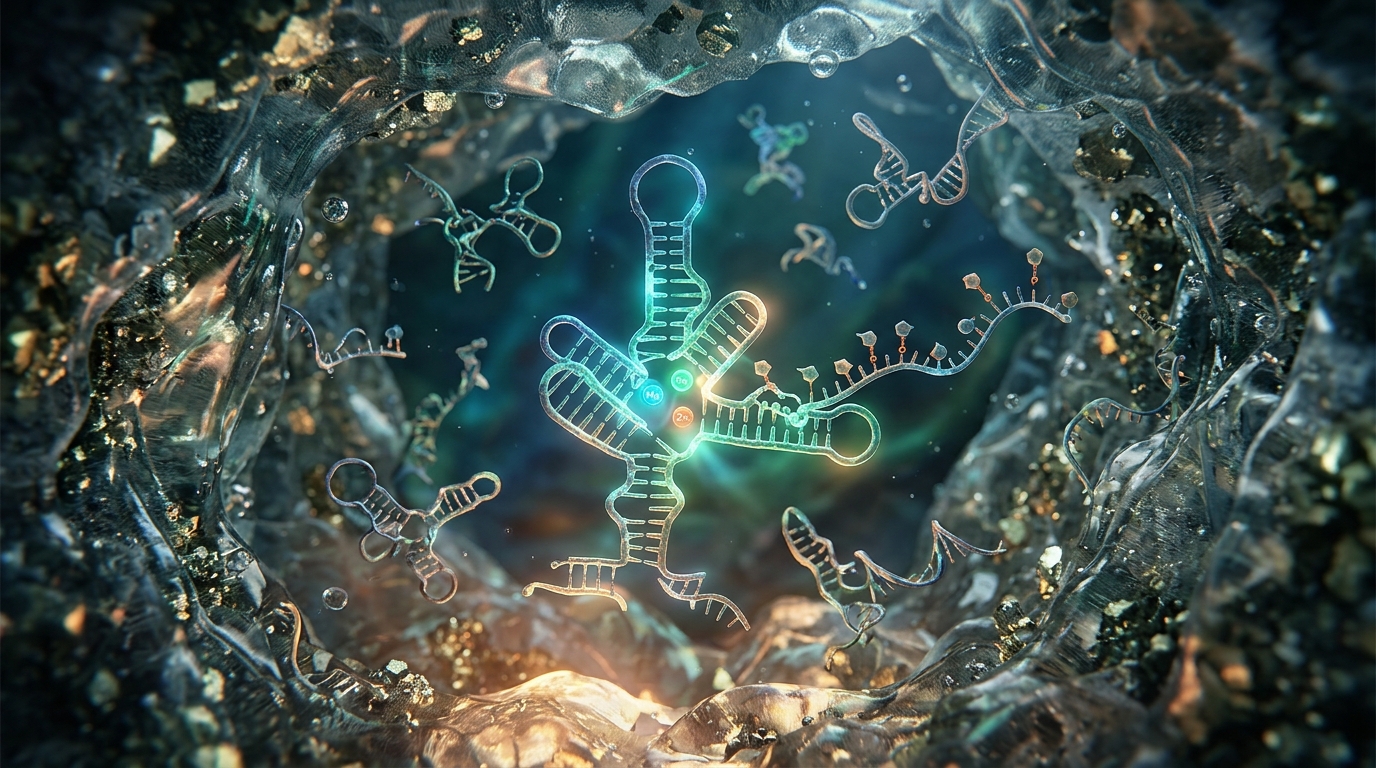
এই বিবর্তনীয় রূপান্তরের অকাট্য প্রমাণ ধরা পড়ে যখন বিজ্ঞানীরা জীবকোষের প্রোটিন তৈরির আণবিক কারখানা রাইবোসোমের পারমাণবিক গঠন উন্মোচন করেন: যে সক্রিয় কেন্দ্রে অ্যামিনো অ্যাসিডগুলো যুক্ত হয়ে প্রোটিন শৃঙ্খল তৈরি করে (পেপটাইডিল ট্রান্সফারেজ সেন্টার), তা শতভাগ রাইবোসোমাল আরএনএ দ্বারা গঠিত, সেখানে কোনো প্রোটিন এনজাইম নেই! প্রোটিন মূলত প্রাচীন অনুঘটনশীল আরএনএ-রই সৃষ্টি।
আরএনএ জগৎ (RNA World) পর্বে ($t \approx ৪.০\text{ থেকে } ৩.৮\text{ বিলিয়ন বছর পূর্বে}$) স্বতঃস্ফূর্তভাবে গঠিত নিউক্লিওটাইডগুলো থার্মোফোরিসিসের (তাপীয় পরিচলন স্রোত) মাধ্যমে হাইড্রোথার্মাল মাইক্রো-প্রকোষ্ঠে উচ্চ ঘনত্বে পুঞ্জীভূত হতে থাকে। লক্ষ লক্ষ বছরের তাপমাত্রা ও আর্দ্রতার চক্রে আরএনএ পলিমার দীর্ঘতর হয়, রাইবোজাইমে ভাঁজ হয়ে ওঠে এবং নিজস্ব টেমপ্লেট থেকে প্রতিলিপি তৈরির দক্ষতা অর্জন করে।
কোষীয় প্রস্থান: খনিজ খাঁচা থেকে মুক্তি
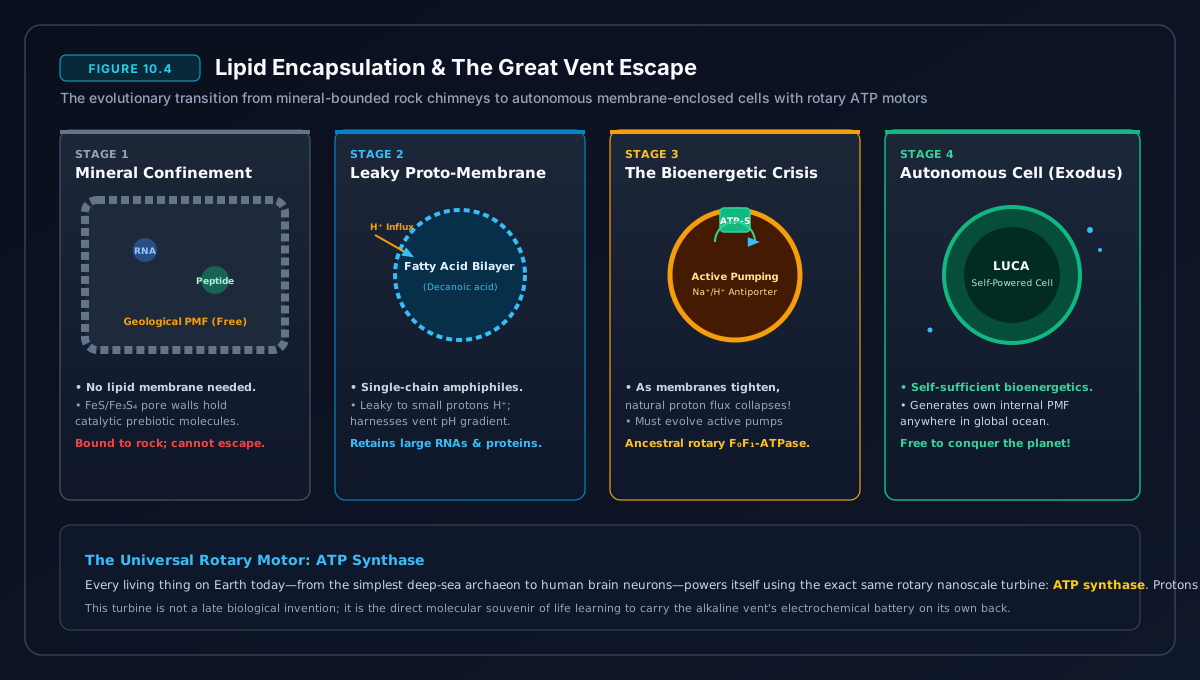
অজৈব খনিজ কুঠুরির ভেতরে যখন অনুঘটনশীল আরএনএ ও বিপাকীয় বিক্রিয়া বিকশিত হচ্ছিল, তখন সমান্তরালভাবে আরেকটি ভৌত প্রক্রিয়া চলছিল: লিপিডের স্বতঃস্ফূর্ত সমাবেশ। সরল একক-শৃঙ্খল ফ্যাটি অ্যাসিড পানিতে নিমজ্জিত হলে স্বতঃস্ফূর্তভাবে একত্রিত হয়ে স্থিতিশীল আণুবীক্ষণিক দ্বি-স্তরী ভেসিকেল (লাইপোজোম) গঠন করে।
কালক্রমে স্ব-প্রতিলিপনশীল আরএনএ ও পেপটাইড জালিকা এই লিপিড গোলকের ভেতরে আবদ্ধ হয়ে পড়ে। চিমনির ভূতাত্ত্বিক প্রোটন গ্রেডিয়েন্টের ওপর নির্ভরতা থেকে মুক্তি পেতে এই আদিম প্রোটো-কোষগুলো নিজেদের ঝিল্লিতে প্রোটন পাম্প ($\text{F}_1\text{F}_0$-ATP সিন্থেজের পূর্বসূরি) বিবর্তিত করে। যখন একটি প্রোটো-কোষ নিজস্ব ঝিল্লির দুই পাশে আয়ন গ্রেডিয়েন্ট বজায় রাখার সক্ষমতা অর্জন করল, সে তখন মুক্ত হলো। খনিজ চিমনি থেকে বিচ্ছিন্ন হয়ে জীবকোষ ভেসে চলল মুক্ত মহাসাগরের বুকে।
লুকা (LUCA): পৃথিবীর সকল প্রাণের আদিমতম সাধারণ পূর্বপুরুষ
আজ পৃথিবীর বুকে যে কোনো প্রাণী, বৃক্ষ, অণুজীব কিংবা মানুষ—অন্ত্রের ব্যাকটিরিয়া E. coli থেকে শুরু করে নীল তিমি বা একজন গবেষক—সবারই অবিচ্ছিন্ন বংশানুক্রমিক ধারা গিয়ে মেলে একটি একক আদিম এককোষী জনসংখ্যার কাছে: লুকা (LUCA – Last Universal Common Ancestor), যার অস্তিত্ব ছিল প্রায় ৩.৮ থেকে ৪.০ বিলিয়ন বছর পূর্বে।
২০১৬ সালে উইলিয়াম মার্টিনের নেতৃত্বাধীন গবেষক দল ৬.১ মিলিয়নেরও বেশি প্রোক্যারিয়ট জিন বিশ্লেষণ করে ৩৫৫টি সার্বজনীন জিন পরিবার শনাক্ত করেন যা প্রাচীন ব্যাকটেরিয়া ও আর্কিয়া উভয়ের মধ্যেই সংরক্ষিত। এই জিনগুলো থেকে লুকার স্পষ্ট রূপরেখা উন্মোচিত হয়:
- আবাসস্থল: চরম অবাত (anaerobe), যা $\text{H}_2, \text{CO}_2$ ও লৌহ সমৃদ্ধ উষ্ণ, অন্ধকার গভীর সমুদ্রের হাইড্রোথার্মাল পরিবেশে বাস করত।
- বিপাক: স্বভোজী (autotrophic), যা ট্রানজিশন ধাতব ক্লাস্টার ($[\text{Fe}_4\text{S}_4]$ এবং $[\text{NiFeS}]$) ব্যবহার করে উড-জুংডাল পথে সরাসরি অজৈব কার্বন স্থিতিকরণ করত।
- জিনগত যন্ত্রপাতি: একটি সার্বজনীন জেনেটিক কোড, ডিএনএ জিনোম, মেসেঞ্জার আরএনএ প্রতিলিপন এবং ২০টি অ্যামিনো অ্যাসিড ব্যবহারের উপযোগী আধুনিক রাইবোসোম।
প্রিবায়োটিক ভূ-রসায়ন বনাম সার্বজনীন জীবকোষের স্থাপত্য
| জৈবরাসায়নিক বৈশিষ্ট্য | হাইড্রোথার্মাল ভেন্টের প্রিবায়োটিক উৎস | আধুনিক কোষীয় প্রয়োগ (লুকা ও উত্তরসূরি) |
|---|---|---|
| প্রকোষ্ঠায়ন (Compartmentalization) | ছিদ্রযুক্ত আয়রন-সালফার / কার্বনেট খনিজ চিমনি | পরিবহন প্রোটিন খচিত লিপিড বাইলেয়ার কোষঝিল্লি |
| শক্তির চালিকাশক্তি (Driving Force) | প্রাকৃতিক ভূতাত্ত্বিক $\Delta\text{pH}$ গ্রেডিয়েন্ট ($৯ \to ৬$) | কেমিওসমোটিক প্রোটন-চালিকা শক্তি চালিত $\text{F}_1\text{F}_0$-ATP সিন্থেজ |
| কার্বন স্থিতিকরণ (Carbon Fixation) | অজৈব সার্পেনটিনাইজেশন ও $\text{FeS}$ অনুঘটন | উড-জুংডাল (অ্যাসিটাইল-CoA) বিপাকীয় পথ |
| অনুঘটন যন্ত্রপাতি (Catalysis) | গ্রেগাইট ($[\text{Fe}_4\text{S}_4]$) ও ম্যাকিনাউইট খনিজ | ফেরোডক্সিন, হাইড্রোজিনেজ এবং মেটালোএনজাইম কো-ফ্যাক্টর |
| তথ্য সংরক্ষণ (Information Storage) | স্ব-প্রতিলিপনশীল অনুঘটনশীল রাইবোজাইম (RNA World) | দ্বি-সূত্রী ডিএনএ জিনোম ও আরএনএ মধ্যস্থতাকারী |
| প্রোটিন সংশ্লেষণ (Protein Synthesis) | আরএনএ টেমপ্লেটে ঘটিত পেপটাইড বন্ধন | সার্বজনীন 70S/80S রাইবোসোম (১০০% আরএনএ অনুঘটন কেন্দ্র) |
মহা বিভাজন: ব্যাকটেরিয়া এবং আর্কিয়া
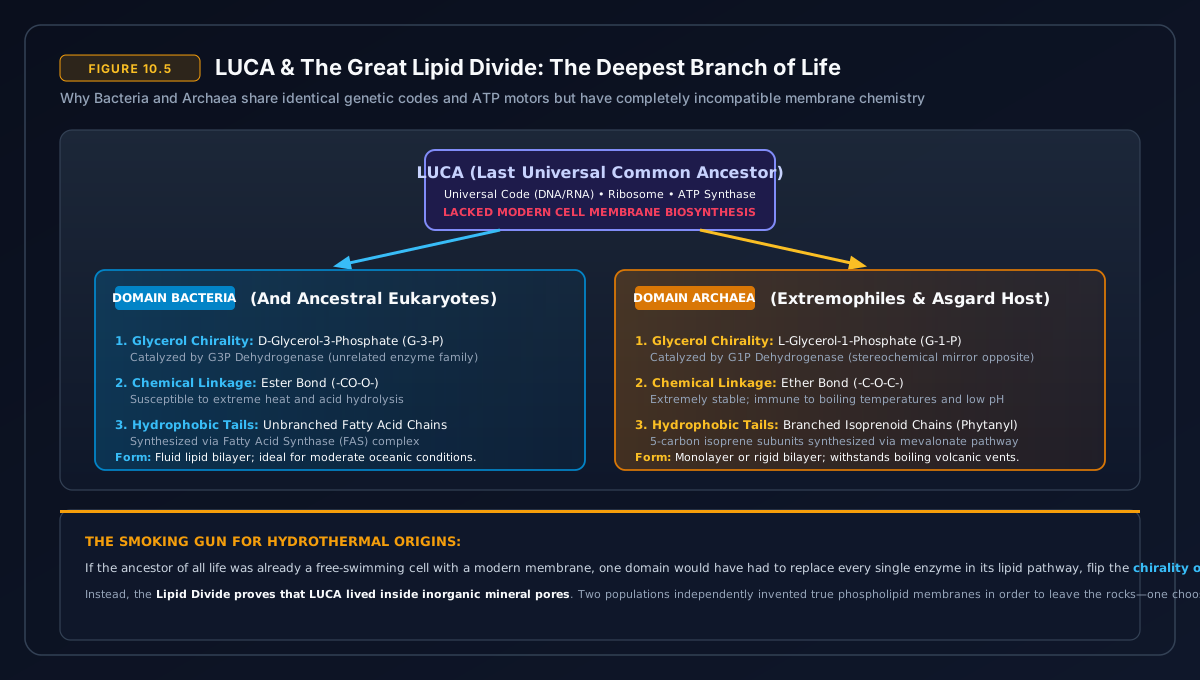
ভেন্ট চিমনি থেকে মুক্ত হওয়ার পরপরই লুকা দুটি প্রাথমিক জীবে বিভক্ত হয়ে পড়ে: ব্যাকটেরিয়া (Bacteria) এবং আর্কিয়া (Archaea)। মজার বিষয় হলো, তারা অভিন্ন জেনেটিক কোড ও রাইবোসোম ব্যবহার করলেও তাদের কোষঝিল্লির লিপিড সম্পূর্ণ ভিন্ন:
- ব্যাকটেরিয়ার লিপিড: ডি-গ্লিসারলের সাথে এস্টার বন্ধনে আবদ্ধ সরল ফ্যাটি অ্যাসিড শৃঙ্খল।
- আর্কিয়ার লিপিড: এল-গ্লিসারলের সাথে ইথার বন্ধনে আবদ্ধ শাখাযুক্ত আইসোপ্রিনয়েড হাইড্রোকার্বন শৃঙ্খল—যা বিপুল কাঠামোগত দৃঢ়তা প্রদান করে এবং আর্কিয়াকে চরম বৈরী পরিবেশে (অতি-লবণাক্ত জল, ফুটন্ত অম্লীয় প্রস্রবণ এবং মাটির গভীর ভূত্বক) বিজয়ী করেছে।
পরবর্তী এক বিলিয়ন বছর ধরে ব্যাকটেরিয়া ও আর্কিয়া ছিল পৃথিবীর অবিসংবাদিত অধিপতি। তারা আলোহীন মহাসমুদ্রের প্রতিটি প্রান্তে হাইড্রোজেন, সালফার, লোহা ও মিথেন বিপাক করে টিকে ছিল। কিন্তু সাগরের রৌদ্রোজ্জ্বল উপরিভাগে কিছু সালোকসংশ্লেষী ব্যাকটেরিয়া নিঃশব্দে এক যুগান্তকারী রাসায়নিক উদ্ভাবনের প্রস্তুতি নিচ্ছিল, যা সমগ্র গ্রহের ভূতত্ত্বকে চিরতরে ওলটপালট করে দেবে: অক্সিজেনভিত্তিক সালোকসংশ্লেষণ।
মহাবিশ্বের মহাবৃত্তান্ত-এর পর্ব ১১-তে আমরা প্রত্যক্ষ করব পৃথিবীর ইতিহাসের সবচেয়ে প্রলয়ঙ্কর ও অলৌকিক রূপান্তর: অক্সিজেনের মহাবিপর্যয় এবং অলৌকিক রূপান্তর — সায়ানোব্যাকটেরিয়া, মহা-অক্সিডেশন ঘটনা এবং হুরোনিয়ান তুষারগোলক পৃথিবী।
তথ্যসূত্র ও সহায়ক গ্রন্থপঞ্জি
- Miller, S. L. (1953). “A Production of Amino Acids Under Possible Primitive Earth Conditions.” Science, 117(3046), 528–529. doi:10.1126/science.117.3046.528.
- Russell, M. J., & Hall, A. J. (1997). “The emergence of life from iron monosulphide bubbles at a submarine hydrothermal redox and pH front.” Journal of the Geological Society, 154(3), 377–402. doi:10.1144/gsjgs.154.3.0377.
- Martin, W., & Russell, M. J. (2003). “On the origins of cells: a hypothesis for the evolutionary transitions from abiotic geochemistry to chemoautotrophic prokaryotes.” Phil. Trans. R. Soc. Lond. B, 358(1429), 59–85. doi:10.1098/rstb.2002.1183.
- Lane, N., Allen, J. F., & Martin, W. (2010). “How energy flow shaped the evolution of life.” Nature, 467, 929–936. doi:10.1038/nature09486.
- Gilbert, W. (1986). “Origin of life: The RNA world.” Nature, 319, 618. doi:10.1038/319618a0.
- Cech, T. R. (1986). “A model for the RNA-catalyzed replication of RNA.” Proc. Natl. Acad. Sci. USA, 83(12), 4360–4363. doi:10.1073/pnas.83.12.4360.
- Weiss, M. C., et al. (2016). “The physiology and habitat of the last universal common ancestor.” Nature Microbiology, 1, 16116. doi:10.1038/nmicrobiol.2016.116.