ব্যাকটেরিয়া এবং আর্কিয়া নিঃসন্দেহে পৃথিবীর অপ্রতিদ্বন্দ্বী প্রাণরাসায়নিক যাদুকর; তবুও বিবর্তনের চার বিলিয়ন বছরে তারা কখনো একটি বহুকোষী বৃক্ষ, একটি মাশরুম, একটি পতঙ্গ কিংবা মানুষের মস্তিষ্ক তৈরি করতে পারেনি। তারা এক অনতিক্রম্য শক্তির বাধার পেছনে আণুবীক্ষণিক কণা হিসেবে বন্দি ছিল। তারপর, প্রায় ১.৮ বিলিয়ন বছর পূর্বে, মহাবিশ্বের ইতিহাসে এক অনন্য ও অভাবনীয় জৈবিক সংযুক্তি সংঘটিত হলো: একটি প্রাচীন আর্কিয়ন কোষ একটি সবাত ব্যাকটেরিয়াকে গ্রাস করে এবং তাকে হজম করার বদলে গড়ে তোলে এক শাশ্বত মৈত্রী। সেই বন্দি ব্যাকটেরিয়াটি পরিণত হয় মাইটোকনড্রিয়ায়—যা জিনপ্রতি শক্তির পরিমাণ দুই লাখ গুণ বাড়িয়ে দিয়ে উন্মুক্ত করে জটিল ইউক্যারিওটিক জীবজগতের মহাবিপ্লব।
প্রোক্যারিয়টের কাচের ছাদ: জৈব-শক্তির নিগড়
ব্যাকটেরিয়া এবং আর্কিয়া গ্রহের প্রতিটি পরিবেশগত অঞ্চল জয় করেছে: তারা পারমাণবিক চুল্লির ভেতরে, ভূত্বকের কিলোমিটার গভীর পাথরে কিংবা ফুটন্ত গন্ধক প্রস্রবণে বহাল তবিয়তে বেঁচে থাকে। তবুও গাঠনিকভাবে, সাড়ে তিন বিলিয়ন বছর আগের আর্কিয়ান চার্ট শিলায় পাওয়া একটি জীবাশ্ম ব্যাকটেরিয়ার সাথে আজকের ব্যাকটেরিয়ার রূপের কোনো মৌলিক পার্থক্য নেই।
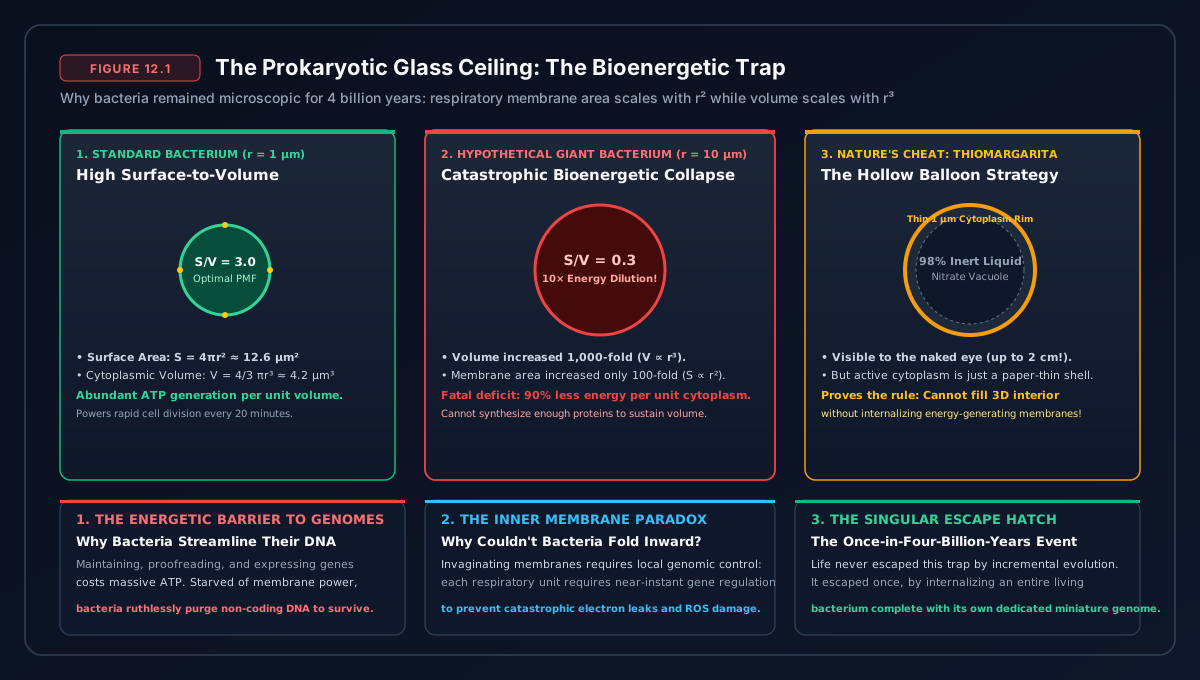
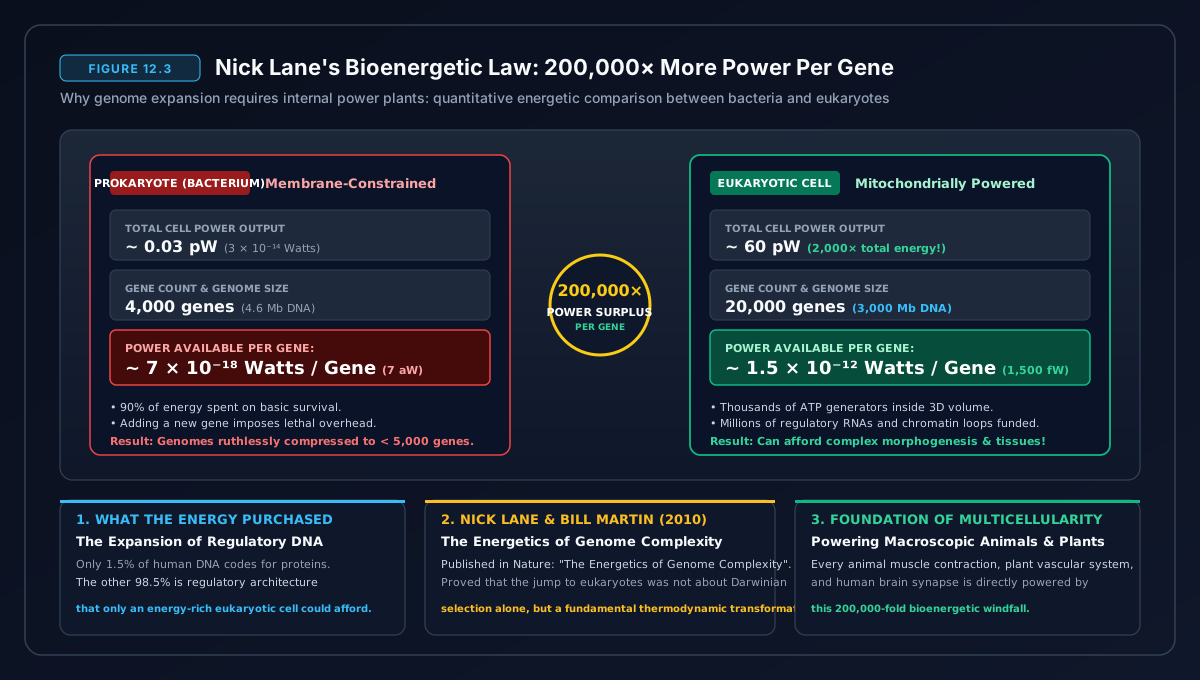
কেন প্রোক্যারিয়টরা কখনো প্রকৃত ম্যাক্রোস্কোপিক জটিলতায় পৌঁছাতে পারল না? ২০১০ সালে প্রাণরসায়নবিদ নিক লেন (Nick Lane) এবং বিবর্তনীয় জিনতত্ত্ববিদ উইলিয়াম মার্টিন (William Martin) কোষের আকারের জৈব-শক্তি সংক্রান্ত সমীকরণ সমাধান করে এই মৌলিক রহস্যের দ্বার উন্মোচন করেন:
সমস্ত প্রোক্যারিয়ট কোষে শ্বসন প্রক্রিয়া তাদের বাইরের প্লাজমা ঝিল্লির সাথে যুক্ত। ঝিল্লির দুই পাশে প্রোটন পাম্প করে তড়িৎরাসায়নিক গ্রেডিয়েন্ট তৈরি করা হয়, যা এটিপি সংশ্লেষ পরিচালনা করে। যদি একটি ব্যাকটেরিয়ার ব্যাসার্ধ দশ গুণ বৃদ্ধি পায়, তবে তার ভেতরের আয়তন (এবং শক্তির চাহিদা) বৃদ্ধি পায় এক হাজার গুণ ($V \propto r^3$), অথচ তার পৃষ্ঠতলের ঝিল্লির ক্ষেত্রফল (এবং শক্তি সরবরাহ) বাড়ে মাত্র একশত গুণ ($A \propto r^2$)।
পৃষ্ঠতলের ক্ষেত্রফলের এই ঘাটতি দূর করতে একটি বিশালাকার ব্যাকটেরিয়াকে (যেমন Thiomargarita namibiensis) অভ্যন্তরীণ ঝিল্লি ভাঁজ করতে হয় এবং ইলেকট্রন পরিবহন তদারকির জন্য পরিধির কাছাকাছি নিজস্ব জিনোমের হাজার হাজার প্রতিলিপি তৈরি করতে হয়। একটি একক বিশালাকার ব্যাকটেরিয়া তার দেহে ২০,০০০টি পূর্ণাঙ্গ ডিএনএ কপি বহন করতে পারে! তার সমস্ত বিপাকীয় শক্তি কেবল এই অপরিহার্য জিনগুলোর পুনরাবৃত্ত অনুলিপি ও অনুবাদেই ফুরিয়ে যায়। জটিল জিন নিয়ন্ত্রণ, অন্তঃকোষীয় পরিবহন বা নতুন প্রোটিন পরিবার বিবর্তনের জন্য তার হাতে কোনো উদ্বৃত্ত শক্তি থাকে না।
এন্ডোসিমবায়োটিক বিপ্লব: দুই বিশ্বের মেলবন্ধন
১৯৬৭ সালে বিবর্তনীয় জীববিজ্ঞানী লিন মারগুলিস (Lynn Margulis) তাঁর যুগান্তকারী গবেষণাপত্র “On the Origin of Mitosing Cells” প্রকাশ করে ধারাবাহিক এন্ডোসিমবায়োসিস (Serial Endosymbiosis) তত্ত্বকে পুনরুজ্জীবিত করেন। মারগুলিস দাবি করেন যে ইউক্যারিওট কোষের শক্তির কারখানা—মাইটোকনড্রিয়া এবং ক্লোরোপ্লাস্ট—ভেতর থেকে ধাপে ধাপে গড়ে ওঠেনি, বরং তারা একসময়কার মুক্তজীবী আদিম প্রোক্যারিয়ট ছিল যা কোনো এক প্রাচীন পোষক কোষ গ্রাস করেছিল।
কয়েক দশক ধরে মারগুলিসের তত্ত্ব তীব্র একাডেমিক সংশয়বাদের মুখোমুখি হয়েছিল। আজ আধুনিক জিনোমিক্স একে প্রশ্নাতীত বৈজ্ঞানিক সত্যে প্রতিষ্ঠিত করেছে:
- মাইটোকনড্রিয়ার নিজস্ব বৃত্তাকার ব্যাকটেরিয়াল ডিএনএ (mtDNA) রয়েছে এবং তারা কোষের ভেতর স্বাধীনভাবে দ্বি-বিভাজন প্রক্রিয়ায় বংশবৃদ্ধি করে।
- মাইটোকনড্রিয়ার রাইবোসোম ইউক্যারিওটিক ($৮০\text{S}$) নয়, বরং ব্যাকটেরিয়ার অনুরূপ ($৭০\text{S}$), এবং তা ব্যাকটেরিয়ার অ্যান্টিবায়োটিকের (যেমন ক্লোরামফেনিকল ও স্ট্রেপ্টোমাইসিন) প্রতি সংবেদনশীল।
- মাইটোকনড্রিয়ার দ্বৈত ঝিল্লি রয়েছে, যার অভ্যন্তরীণ ঝিল্লিতে কার্ডিওলিপিন নামক বিশেষ লিপিড বিদ্যমান—যা কেবল ব্যাকটেরিয়ার ঝিল্লিতেই পাওয়া যায়।
অংশীদারদের পরিচয়: আসগার্ড আর্কিয়া ও আলফাপ্রোটিওব্যাকটেরিয়া
২০১৫ সালে উত্তর আটলান্টিক শৈলশিরার “লোকিস ক্যাসেল”-এর সমুদ্রগর্ভস্থ পলল থেকে সংগৃহীত ডিএনএ বিশ্লেষণে বিজ্ঞানীদের চোখে পড়ে এক অদ্ভুত জীবগোষ্ঠী: আসগার্ড আর্কিয়া (Asgard Archaea বা Lokiarchaeota)। জিনোমিক বিশ্লেষণে প্রমাণিত হয় যে আসগার্ড আর্কিয়া হলো জটিল ইউক্যারিওটিক জীবনের নিকটতম জীবিত এককোষী আত্মীয়: তাদের ডিএনএ-তে ইউক্যারিওট সিগনেচার প্রোটিন (ESP) বিদ্যমান, যা অ্যাকটিন-ভিত্তিক সাইটোস্কেলটন ও ঝিল্লি নিয়ন্ত্রণের সংকেত দেয়।
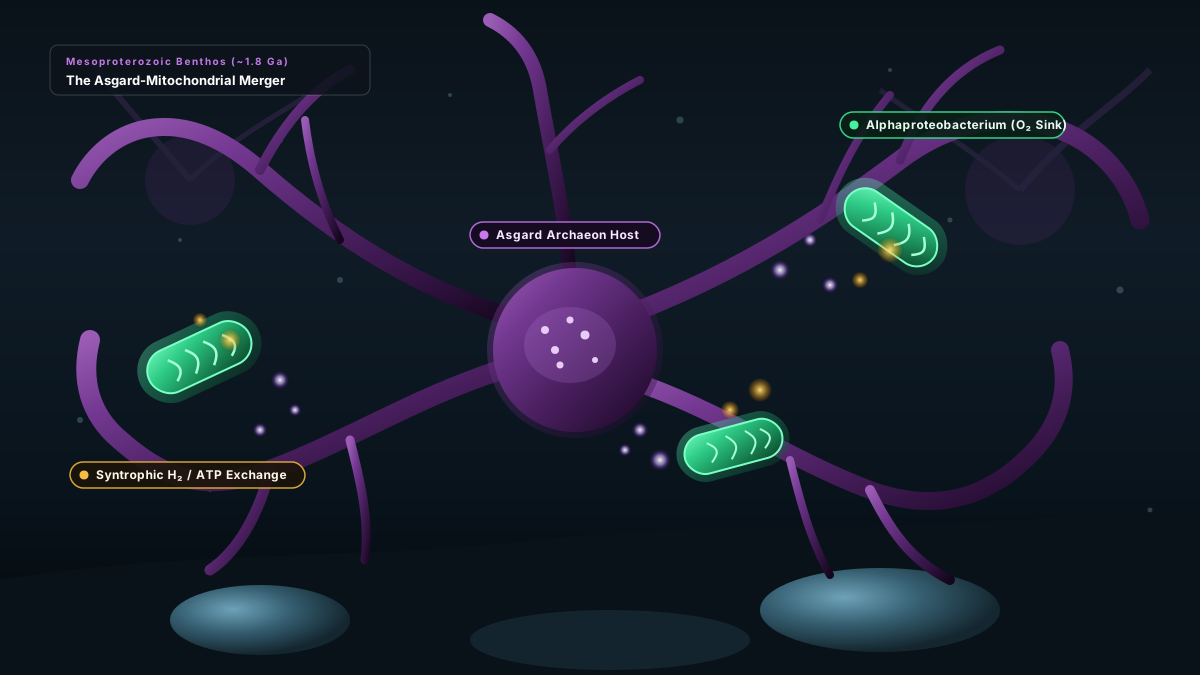
প্রায় ১.৮ বিলিয়ন বছর পূর্বে, একটি অবাত আসগার্ড-সদৃশ আর্কিয়ন কোষের সাথে একটি সবাত আলফাপ্রোটিওব্যাকটেরিয়ার (Alphaproteobacterium) পারস্পরিক মিথোজীবী সম্পর্ক গড়ে ওঠে। আর্কিয়ন ব্যাকটিরিয়াটিকে জৈব পুষ্টি সরবরাহ করত; আর সবাত শ্বসনে সক্ষম ব্যাকটিরিয়াটি ক্ষতিকর অক্সিজেন বিষমুক্ত করে উচ্চমাত্রার এটিপি শক্তি জুগিয়ে দিত। কালক্রমে ব্যাকটিরিয়াটি আর্কিয়নের সাইটোপ্লাজমের ভেতরে স্থায়ী আশ্রয় লাভ করে—সূচিত হয় জীববিজ্ঞানের সবচেয়ে প্রভাবশালী সহবাস।
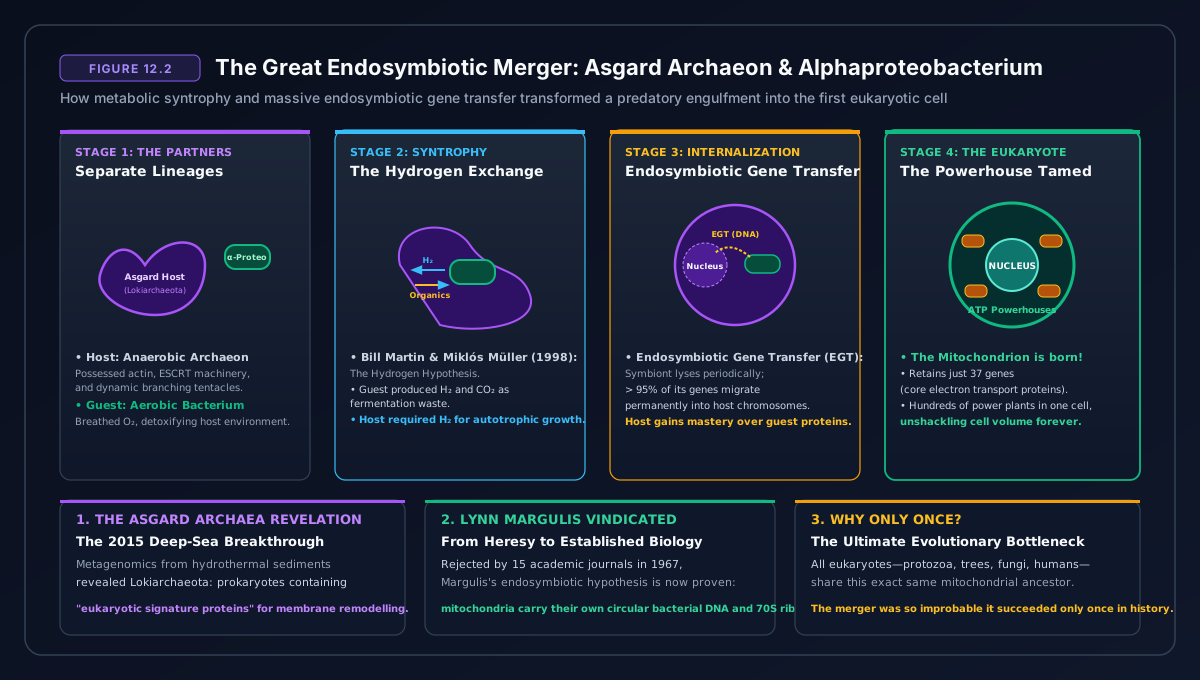
শক্তির অভূতপূর্ব উল্লম্ফন: জিনপ্রতি দুই লাখ গুণ বেশি শক্তি
পোষকের ভেতরে ঢুকে পড়ার পর আদিম মাইটোকনড্রিয়া এক আমূল জিনগত পুনর্বিন্যাসের মধ্য দিয়ে যায়: ল্যাটারাল জিন ট্রান্সফারের মাধ্যমে এটি তার ৯৯%-এরও বেশি জিন সরাসরি পোষক কোষের নিউক্লিয়াসে স্থানান্তর করে, নিজের কাছে রেখে দেয় কেবল অত্যন্ত প্রয়োজনীয় একটি ক্ষুদ্র জিনোম (মানব মাইটোকনড্রিয়াল ডিএনএ-তে মাত্র ১৩টি প্রোটিন তৈরির কোড সংরক্ষিত)।
জিনোম পরিচালনার ভার কেন্দ্রীয় নিউক্লিয়াসের ওপর সঁপে দিয়ে সাইটোপ্লাজম জুড়ে শত শত বা হাজার হাজার ভাঁজযুক্ত মাইটোকনড্রিয়াল পাওয়ার স্টেশন সাজিয়ে ইউক্যারিওট কোষ পৃষ্ঠতল বনাম আয়তনের চিরন্তন সীমাবদ্ধতা চিরতরে ভেঙে ফেলে:
$$\frac{\text{প্রাপ্য শক্তি}}{\text{জিন}} \approx ২০০,০০০\times \text{ (প্রোক্যারিয়টের তুলনায় ইউক্যারিওটে বেশি)}$$
এই বিপুল শক্তির উদ্বৃত্ত নিয়ে ইউক্যারিওট কোষ এক বিশালাকার জিনোম পরিচালনার সামর্থ্য অর্জন করে: হাজার হাজার নতুন নিয়ন্ত্রক জিন, জটিল স্প্লাইসিং ব্যবস্থা, সংকেত সঞ্চালন শৃঙ্খল এবং মোটর প্রোটিনের (কাইনেসিন ও ডাইনিন) মাধ্যমে অভ্যন্তরীণ মাইক্রোটিউবুল মহাসড়কে উপাদান পরিবহন।
ইউক্যারিওটিক কোষের মূল উদ্ভাবন: নিউক্লিয়াস, ইন্ট্রন এবং সাইটোস্কেলটন
এন্ডোসিমবায়োটিক মেলবন্ধন এমন কিছু যুগান্তকারী কোষীয় উদ্ভাবন এনে দিল যা আজকের প্রতিটি ইউক্যারিওট জীবকে অনন্য করে তোলে:
১. নিউক্লিয়ার পর্দা এবং স্প্লাইসিওসোমাল ইন্ট্রন
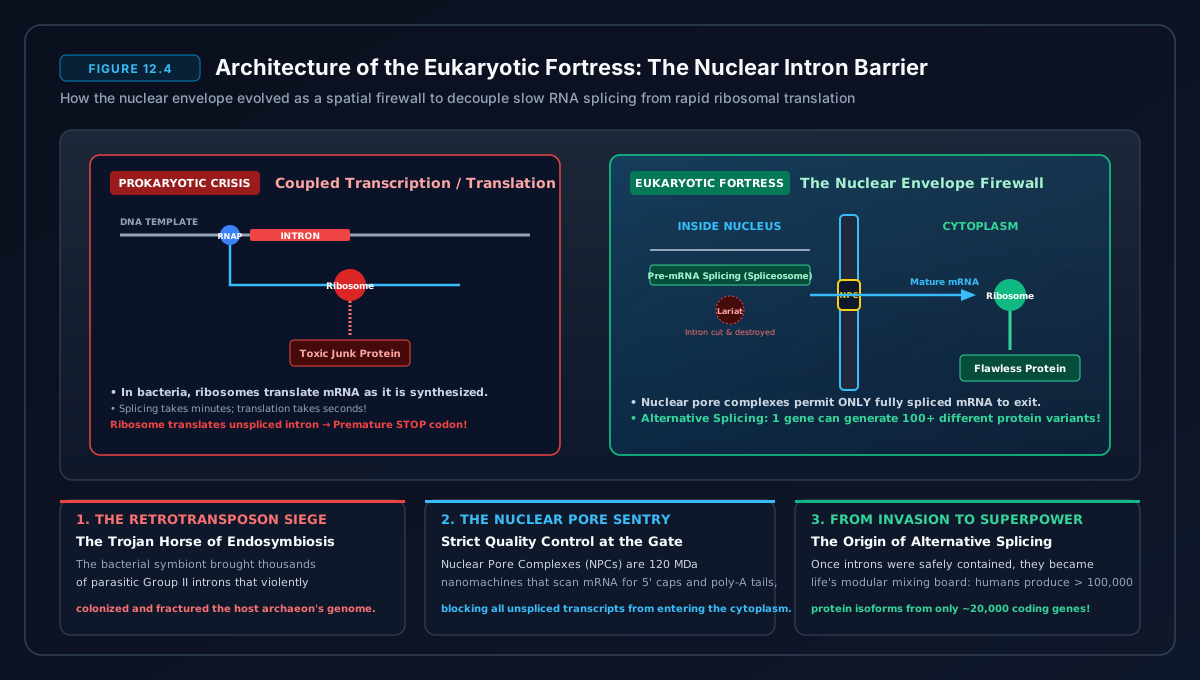
সাইটোপ্লাজমে হাজার হাজার ব্যাকটেরিয়াল এন্ডোসিমবায়োন্ট ভেঙে যাওয়ার ফলে তাদের ডিএনএ টুকরো টুকরো হয়ে পোষকের ক্রোমোজোমকে পরজীবী স্ব-ছাঁটাইকারী গ্রুপ II মোবাইল ইন্ট্রন দিয়ে প্লাবিত করেছিল। প্রোক্যারিয়টের মতো মেসেঞ্জার আরএনএ তৈরি হওয়ার সাথে সাথেই রাইবোসোম অনুবাদ শুরু করলে অকেজো ও ত্রুটিপূর্ণ প্রোটিন উৎপন্ন হতো।
ইউক্যারিওট কোষ একটি স্থানিক প্রাচীর হিসেবে নিউক্লিয়ার পর্দা উদ্ভাবন করে: নিউক্লিয়াসের সুরক্ষিত ভেতরে অনুলিপন এবং ধীরগতির ইন্ট্রন ছাঁটাই (স্প্লাইসিওসোম দ্বারা) সম্পন্ন হয়; কেবল সম্পূর্ণ ত্রুটিমুক্ত ও পরীক্ষিত আরএনএ-কে নিউক্লিয়ার পোর কমপ্লেক্স দিয়ে বাইরে সাইটোপ্লাজমে রাইবোসোমের কাছে পাঠানো হয়।
২. সক্রিয় সাইটোস্কেলটন ও ফ্যাগোসাইটোসিস
ব্যাকটেরিয়ার শক্ত পেপটাইডোগ্লাইকান প্রাচীরের বিপরীতে ইউক্যারিওটের দেহে রয়েছে অ্যাকটিন ও টিউবুলিনের গতিশীল অভ্যন্তরীণ কাঠামো। এটি কোষকে আকার পরিবর্তন, শিকার গ্রাস (ফ্যাগোসাইটোসিস) এবং সুনির্দিষ্ট অন্তঃকোষীয় পরিবহনের সক্ষমতা দেয়।
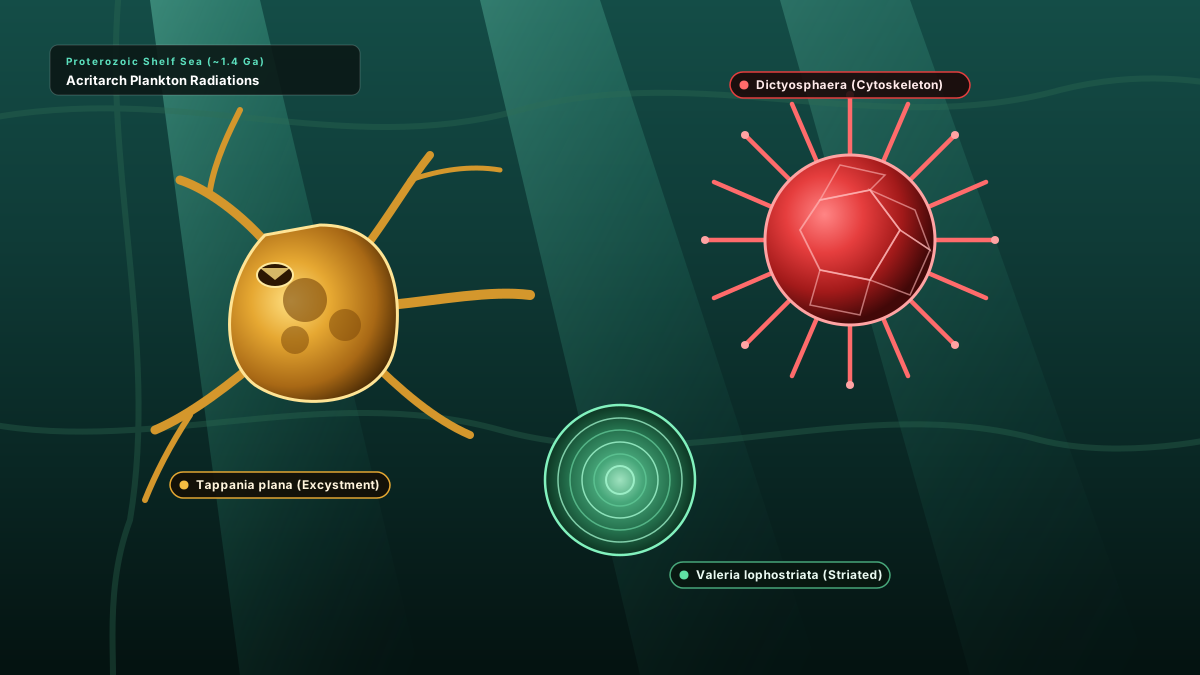
৩. গৌণ এন্ডোসিমবায়োসিস: সবুজ বিপ্লব
প্রায় ১.৫ বিলিয়ন বছর পূর্বে, মাইটোকনড্রিয়া সমৃদ্ধ একটি ইউক্যারিওট কোষ মুক্তজীবী সালোকসংশ্লেষী সায়ানোব্যাকটেরিয়াকে গ্রাস করে। তাকে হজম না করে কোষাঙ্গে রূপান্তরিত করা হয়: জন্ম নেয় প্লাস্টিড (ক্লোরোপ্লাস্ট)। এই একক ঘটনা থেকে জন্ম নেয় লাল শৈবাল, সবুজ শৈবাল এবং পৃথিবীর সমস্ত স্থলজ উদ্ভিদের পূর্বপুরুষরা।
যৌন প্রজননের সূচনা: মুলারের র্যাচেট থেকে মুক্তি
অযৌন প্রোক্যারিয়টিক প্রজননে একটি কোষ বিভাজিত হয়ে দুটি অভিন্ন ক্লোন তৈরি করে। যৌন প্রজননে দুটি সত্তা মিয়োসিস (Meiosis) প্রক্রিয়ায় ক্রোমোজোমের ক্রসিং-ওভার ঘটিয়ে তাদের অর্ধেক জিনগত তথ্য বিনিময় করে। আপাতদৃষ্টিতে যৌনতার একটি দ্বিগুণ খরচ রয়েছে (Twofold Cost of Sex): একজন স্ত্রী কেবল ৫০% জিন সন্তানে পাঠাতে পারেন এবং অর্ধেক সন্তান (পুরুষ) সরাসরি সন্তান প্রসব করতে অক্ষম।
তা সত্ত্বেও কেন যৌন প্রজনন ইউক্যারিওটদের মধ্যে প্রায় সার্বজনীন রূপ ধারণ করল? উত্তর নিহিত রয়েছে পপুলেশন জেনেটিক্সে:
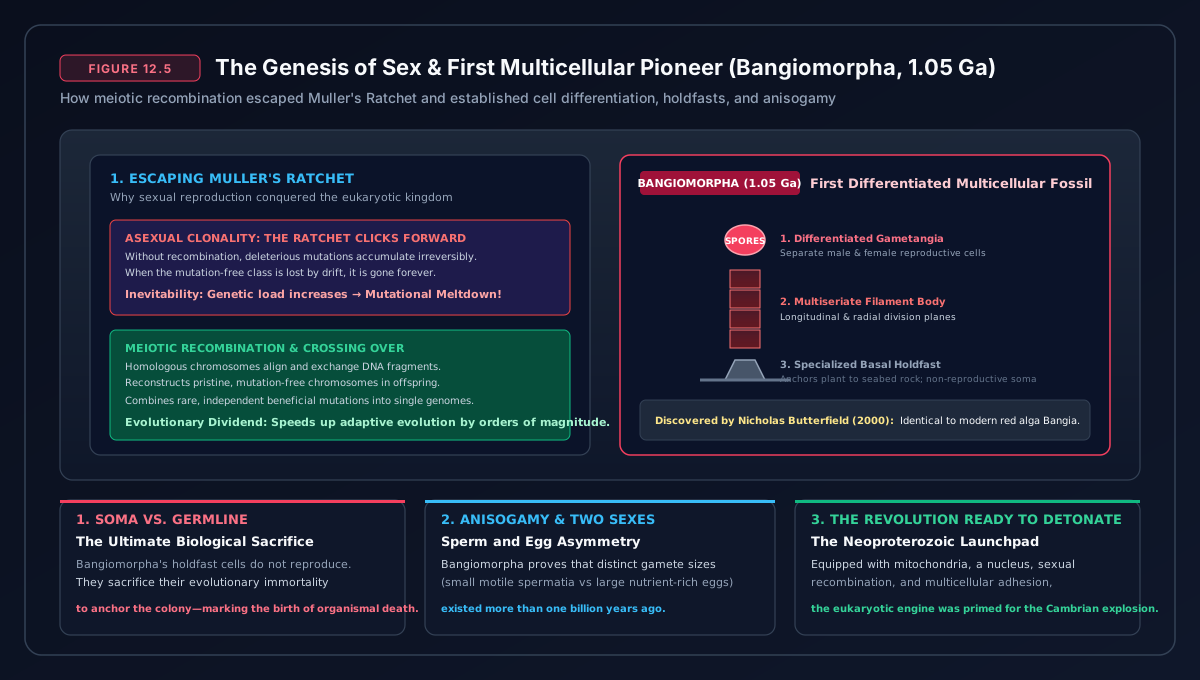
- মুলারের র্যাচেট (Muller’s Ratchet): একটি অযৌন বংশধারায় ক্ষতিকর মিউটেশন কেবল জমতেই থাকে, যা কখনো পিছু হটে না। ফলে কালক্রমে মিউটেশনের চাপে প্রজাতিটি বিলুপ্ত হয়ে যায়। যৌন পুনর্মিলন জিনগুলোকে ওলটপালট করে ক্ষতিকর মিউটেশন ঝেড়ে ফেলে এবং মিউটেশনমুক্ত ক্রোমোজোম পুনর্গঠন করে।
- রেড কুইন হাইপোথিসিস (The Red Queen Hypothesis): “একই স্থানে টিকে থাকতে হলে তোমাকে সমস্ত শক্তি দিয়ে দৌড়াতে হবে।” পরজীবী ও রোগজীবাণু বহুকোষী পোষকের চেয়ে হাজার গুণ দ্রুত বিবর্তিত হয়। অযৌন ক্লোনগুলো একটি অপরিবর্তনশীল প্রতিরক্ষা ব্যবস্থা উপস্থাপন করে। যৌন প্রজনন প্রতিটি প্রজন্মে রোগ প্রতিরোধকারী অ্যালিলগুলো পুনর্বিন্যাস করে ক্ষতিকর মহামারীতে সমগ্র প্রজাতি বিলুপ্ত হওয়া থেকে বাঁচিয়ে রাখে।
প্রথম বহুকোষী পথিকৃৎ: বাঙ্গিমরফা পিউবেসেন্স (*Bangiomorpha pubescens*)
মধ্য-প্রোটেরোজয়িক যুগে (যেখানে ভূ-রাসায়নিক স্থবিরতার কারণে প্রায়শই একে “বোরিং বিলিয়ন” বলা হয়, $১.৮\text{ থেকে } ০.৮\text{ Ga}$), মহাসাগরে এককোষী ইউক্যারিওটরা বৈচিত্র্যময় রূপ ধারণ করছিল। কানাডার আর্কটিক অঞ্চলের সামারসেট দ্বীপে প্রাপ্ত ১.০৫ বিলিয়ন বছর প্রাচীন বাঙ্গিমরফা পিউবেসেন্স হলো ট্যাক্সোনমিকভাবে নিশ্চিত বিশ্বের প্রাচীনতম ম্যাক্রোস্কোপিক ইউক্যারিওট জীবাশ্ম।
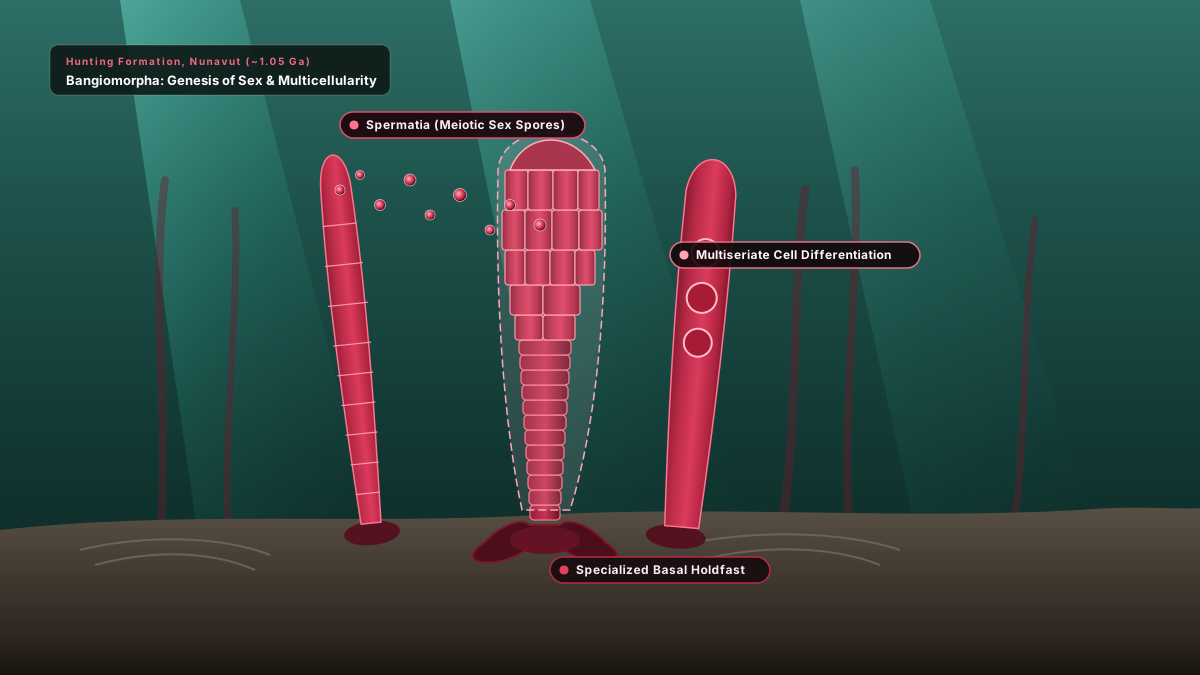
বাঙ্গিমরফা একটি বহুকোষী লাল শৈবাল যা দুটি ঐতিহাসিক জৈবিক বিপ্লব ধারণ করে: কোষীয় বিশেষায়ন (দেহের সাধারণ কোষের পাশাপাশি পাথরে আটকে থাকার জন্য বিশেষায়িত নোঙর কোষ বা হোল্ডফাস্ট) এবং প্রকৃত যৌন প্রজনন (পুরুষ ও স্ত্রী স্পোর)। বহুকোষী কলার ভিত্তিপ্রস্তর—কোষীয় সংযুক্তি (ক্যাডহেরিন), আন্তঃকোষীয় যোগাযোগ (গ্যাপ জংশন) এবং বিকাশমূলক জিন নিয়ন্ত্রণ—অবশেষে নিখুঁতভাবে তৈরি হয়ে গেল।
প্রোক্যারিয়ট বনাম ইউক্যারিওট: জীবনের মহা বিভাজন
| জৈবিক দিক | প্রোক্যারিয়ট (ব্যাকটেরিয়া ও আর্কিয়া) | ইউক্যারিওট (প্রাণী, উদ্ভিদ, ছত্রাক ও প্রোটিস্ট) |
|---|---|---|
| শক্তি উৎপাদন | বহিঃস্থ প্লাজমা ঝিল্লির মাধ্যমে; ক্ষেত্রফল দ্বারা সীমাবদ্ধ | অভ্যন্তরীণ শত শত মাইটোকনড্রিয়ার ক্রিস্টি ঝিল্লিতে |
| জিনপ্রতি শক্তি | ভিত্তিমান ($১\times$) | ২০০,০০০ গুণ বেশি বিপাকীয় উদ্বৃত্ত |
| জিনোমের গঠন | একক বৃত্তাকার ডিএনএ; ঘন সংবদ্ধ; ইন্ট্রনহীন | একাধিক রৈখিক ক্রোমোজোম; টেলোমিয়ার; জটিল স্প্লাইসিওসোমাল ইন্ট্রন |
| প্রকোষ্ঠায়ন | নিউক্লিয়াস নেই; প্রতিলিপন ও অনুবাদ যুগপৎ ঘটে | ঝিল্লিবেষ্টিত নিউক্লিয়াস, এন্ডোপ্লাজমিক রেটিকুলাম, গলগি বস্তু |
| সাইটোস্কেলটন ও চলন | দৃঢ় কোষপ্রাচীর; বহিরাগত ফ্ল্যাজেলা ঘূর্ণন মোটর | গতিশীল অ্যাকটিন/টিউবুলিন কাঠামো; ফ্যাগোসাইটোসিস; মোটর প্রোটিন |
| প্রজনন কৌশল | অযৌন দ্বি-বিভাজন; ল্যাটারাল জিন ট্রান্সফার | মিয়োটিক যৌন প্রজনন; হোমোলোগাস ক্রসিং-ওভার |
| আকার ও জটিলতার সীমা | কঠোরভাবে আণুবীক্ষণিক এককোষী বা সাধারণ ফিলামেন্ট | জটিল ম্যাক্রোস্কোপিক কলা, অঙ্গতন্ত্র এবং প্রাণী দেহ |
ঝড়ের পূর্বাভাস: নিওপ্রোটেরোজয়িকের দ্বারপ্রান্তে
প্রায় ৮০০ মিলিয়ন বছর পূর্বে ইউক্যারিওটিক মঞ্চ পুরোপুরি প্রস্তুত হয়ে যায়: এককোষী ও সরল দলবদ্ধ ইউক্যারিওটরা মাইটোকনড্রিয়া, যৌন প্রজনন, জটিল জিনোম এবং কলা বিশেষায়নের অভ্যন্তরীণ যন্ত্রপাতি অর্জন করে ফেলেছিল। তবুও জীবাশ্ম রেকর্ডে বৃহৎ প্রাণীদের কোনো চিহ্ন ছিল না। কেন?
প্রতিবন্ধকটি আবারও ছিল ভূতাত্ত্বিক: বায়ুমণ্ডলে অক্সিজেনের মাত্রা আধুনিক স্তরের মাত্র ১% থেকে ৫%-এ স্থবির ছিল—যা এককোষীদের জন্য যথেষ্ট হলেও পুরু বহুস্তরবিশিষ্ট প্রাণী কলার ভেতরের কোষে অক্সিজেন ব্যাপনের জন্য ছিল মারাত্মকভাবে অপ্রতুল। প্রাণিজগতের বিবর্তনের সিংহদুয়ার ভেঙে ফেলতে পৃথিবীর প্রয়োজন ছিল আরও এক চূড়ান্ত বৈশ্বিক কম্পন।
মহাবিশ্বের মহাবৃত্তান্ত-এর পর্ব ১৩-তে পৃথিবী তার গভীরতম বরফ-ঘুমের অবসান ঘটিয়ে ফেটে পড়বে জৈবিক উদ্ভাবনের রঙিন উল্লাসে: ক্যামব্রিয়ান বিস্ফোরণ — তুষারগোলক পৃথিবীর গলন, দ্বিপাক্ষিক দেহের নীলনকশা এবং শীর্ষ শিকারীর রাজত্ব।
তথ্যসূত্র ও সহায়ক গ্রন্থপঞ্জি
- Sagan, L. (Margulis) (1967). “On the origin of mitosing cells.” Journal of Theoretical Biology, 14(3), 225–274. doi:10.1016/0022-5193(67)90079-3.
- Lane, N., & Martin, W. (2010). “The energetics of genome complexity.” Nature, 467, 929–936. doi:10.1038/nature09486.
- Spang, A., et al. (2015). “Complex archaea that bridge the gap between prokaryotes and eukaryotes.” Nature, 521, 173–179. doi:10.1038/nature14447.
- Butterfield, N. J. (2000). “Bangiomorpha pubescens n. gen., n. sp.: implications for the evolution of sex, multicellularity, and the radiation of eukaryotes.” Paleobiology, 26(3), 386–404. <a href="https://doi.org/10.1666/0094-8373(2000)0262.0.CO;2″ target=”_blank” rel=”noopener”>doi:10.1666/0094-8373(2000)0262.0.CO;2.
- Maynard Smith, J. (1978). The Evolution of Sex. Cambridge University Press. ISBN: 978-0521293020.
- Van Valen, L. (1973). “A new evolutionary law.” Evolutionary Theory, 1, 1–30.
- Koonin, E. V. (2010). “The origin and early evolution of eukaryotes in the light of phylogenomics.” Genome Biology, 11(5), 209. doi:10.1186/gb-2010-11-5-209.