১৯৪৪ সালে অস্ট্রিয়ান কোয়ান্টাম পদার্থবিদ এরউইন শ্রোডিঙ্গার এক দূরদর্শী পুস্তিকা রচনা করেছিলেন: হোয়াট ইজ লাইফ? (জীবন কী?)। শ্রোডিঙ্গার কোয়ান্টাম তাপগতিবিদ্যার আলোকে যুক্তি দিয়েছিলেন যে জীবদেহের সমস্ত বংশগত তথ্য নিশ্চয়ই সঞ্চিত রয়েছে এক অতিসূক্ষ্ম অপর্যায়বৃত্ত স্ফটিকে (অ্যাপরিয়ডিক ক্রিস্টাল)—এমন এক দীর্ঘ আণবিক পলিমার যা তাপীয় কম্পনে ভেঙে না গিয়ে কোষের ক্ষুদ্রাতিক্ষুদ্র স্থানে বিপুল পরিমাণ জিনগত তথ্য এনকোড করে রাখতে পারে। এই আণবিক স্ফটিকের সন্ধান ছিল বিংশ শতাব্দীর বিজ্ঞানের সবচেয়ে পবিত্র অন্বেষণ।
১৯৫০-এর দশকের শুরুতে নিশ্চিত প্রমাণিত হয় যে বংশগতির মূল বাহক কোনো প্রোটিন নয়, বরং ডিঅক্সিরাইবোনিউক্লিক অ্যাসিড বা ডিএনএ (DNA)। কলম্বিয়া বিশ্ববিদ্যালয়ের রসায়নবিদ এরউইন চারগাফ আবিষ্কার করেন জীবনের এক ধ্রুব নিয়ম—চারগাফের সূত্র:
$$[text{অ্যাডেনিন}] = [text{থাইমিন}] quad text{এবং} quad [text{গুয়ানিন}] = [text{সাইটোসিন}]$$
ভাইরাস থেকে মানুষ পর্যন্ত প্রতিটি জীবে অ্যাডেনিনের পরিমাণ থাইমিনের সমান, এবং গুয়ানিনের পরিমাণ সাইটোসিনের সমান। কিন্তু কেন প্রকৃতি এই কঠোর অনুপাত মেনে চলে, তার পেছনের আণবিক জ্যামিতি তখনও অজানা ছিল।
রোজালিন্ড ফ্র্যাঙ্কলিন ও ঐতিহাসিক ফটো ৫১
এই রহস্যের পরীক্ষামূলক সমাধানটি এসেছিল লন্ডনের কিংস কলেজে কর্মরত প্রতিভাধর ব্রিটিশ ভৌত রসায়নবিদ ও ক্রিস্টালোগ্রাফার রোজালিন্ড এলসি ফ্র্যাঙ্কলিন-এর (১৯২০–১৯৫৮) কাছ থেকে। উচ্চ আর্দ্রতা নিয়ন্ত্রণ করে এক্স-রে রশ্মি নিক্ষেপের মাধ্যমে ফ্র্যাঙ্কলিন ডিএনএ-এর দুটি রূপ আবিষ্কার করেন: কম আর্দ্রতায় ‘A’ রূপ এবং স্বাভাবিক জীবকোষের মতো উচ্চ আর্দ্রতায় সিক্ত ‘B’ রূপ।
১৯৫২ সালের মে মাসে হাইড্রোজেন গ্যাসপূর্ণ ক্যামেরায় দীর্ঘ ৬০ ঘণ্টারও বেশি এক্সপোজার দিয়ে ফ্র্যাঙ্কলিন ধারণ করেন তাঁর ঐতিহাসিক ফটো ৫১ (Photo 51)। এই ফটোগ্রাফটিতে ফুটে উঠেছিল এক নিখুঁত ক্রস আকৃতির এক্স-রে অপবর্তন রেখা—যা ডিএনএ-এর পেঁচানো সিঁড়ির মতো হেলিক্স কাঠামোর এক অনস্বীকার্য প্রমাণ।
ওয়াটসন ও ক্রিকের আণবিক মডেল (১৯৫৩)
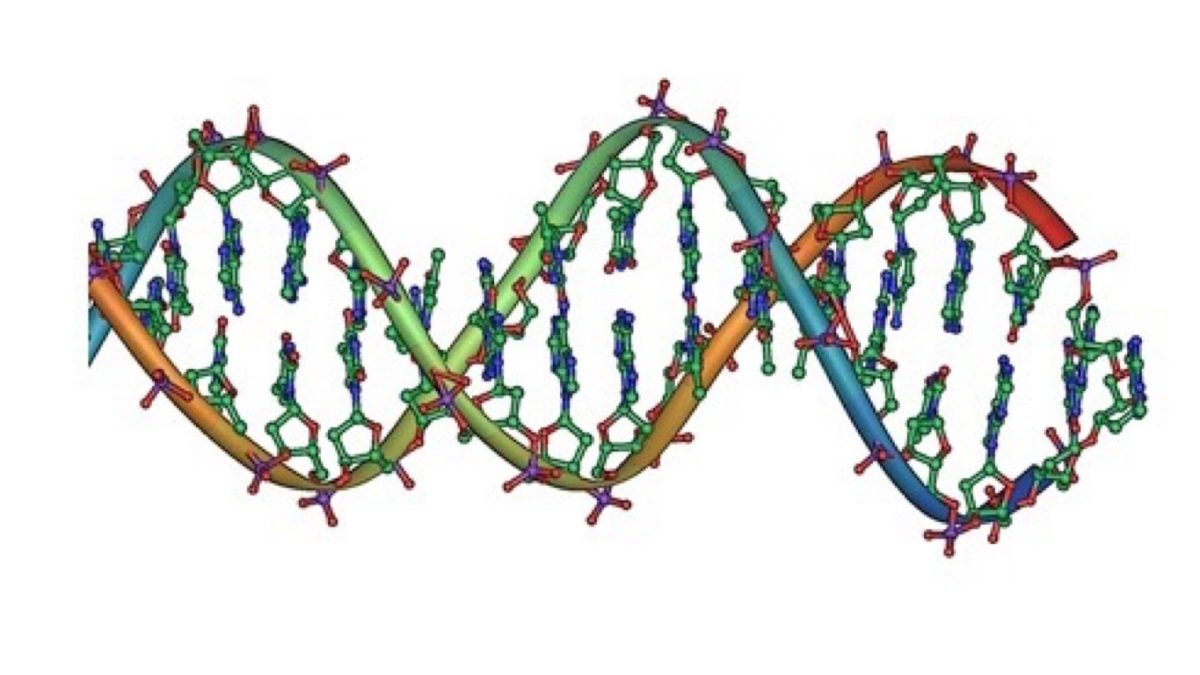
ফ্র্যাঙ্কলিনের অপবর্তন তথ্য এবং চারগাফের সূত্রকে ভিত্তি করে ক্যামব্রিজ বিশ্ববিদ্যালয়ের ক্যাভেন্ডিশ ল্যাবরেটরিতে চব্বিশ বছর বয়সী আমেরিকান জীববিজ্ঞানী জেমস ওয়াটসন এবং ব্রিটিশ পদার্থবিদ ফ্রান্সিস ক্রিক ১৯৫৩ সালের মার্চে ডিএনএ-এর ত্রিমাত্রিক মডেল তৈরি করেন। ওয়াটসন বুঝতে পারলেন নাইট্রোজেনাস বেসগুলোর কিটো-কাঠামোতে হাইড্রোজেন বন্ধনী তৈরি হয় যা নিখুঁতভাবে একে অপরের পরিপূরক:
- অ্যাডেনিন (A) দুটি হাইড্রোজেন বন্ধন দিয়ে যুক্ত হয় থাইমিন (T)-এর সাথে ($A = T$)।
- গুয়ানিন (G) তিনটি হাইড্রোজেন বন্ধন দিয়ে যুক্ত হয় সাইটোসিন (C)-এর সাথে ($G equiv C$)।
সুগার ও ফসফেটের দুটি সুতা বিপরীতমুখী সমান্তরালে (অ্যান্টি-প্যারালাল, $5^prime rightarrow 3^prime$) পরস্পরকে জড়িয়ে একটি দ্বিসূত্রক ডাবল হেলিক্স গঠন করে। ১৯৫৩ সালের ২৫ এপ্রিল নেচার জার্নালে প্রকাশিত মাত্র এক পৃষ্ঠার গবেষণাপত্রে ওয়াটসন ও ক্রিক লিখেছিলেন সেই অবিস্মরণীয় বাক্য:
“আমাদের দৃষ্টি এড়ায়নি যে, আমরা যে সুনির্দিষ্ট বেস-জোড়া কাঠামো প্রস্তাব করেছি, তা বংশগতির উপাদানের হুবহু অনুলিপিকরণের (রেপ্লিকেশন) এক তাৎক্ষণিক মেকানিজম নির্দেশ করে।”
যেহেতু প্রতিটি ক্ষারক কেবল তার পরিপূরক ক্ষারকের সাথেই যুক্ত হতে পারে, তাই ডিএনএ-এর দুটি সুতা আলাদা হয়ে গেলে প্রতিটি সুতা হুবহু নতুন একটি ডিএনএ তৈরির ছাঁচ হিসেবে কাজ করতে পারে। জীবনের মূল রহস্য কোনো অলৌকিক প্রাণশক্তি নয়; এটি ছিল হাইড্রোজেন বন্ধনী দ্বারা পরিচালিত কোয়ান্টাম রসায়নের এক অমর তথ্যপ্রবাহ।